Histoires Naturelles, Écrire la Nature en ligne n°4 – 17 septembre 2026
Deliry Cyrille
Résumé
La Bergeronnette de Yarrell est généralement traitée comme une sous-espèce de la Bergeronnette grise, Motacilla alba yarrellii Gould, 1837. Elle fut cependant décrite comme espèce sous le nom Motacilla yarrellii (Gould 1837), statut proposé à nouveau par certains auteurs, notamment Sangster & al. (1999).
J’ai publié une première synthèse publiée en 2022 (Deliry 2022) qui attirait l’attention sur cette question ainsi que sur la distribution, la phénologie et la probable sous-détection de yarrellii en France. Le présent article réexamine une partie de ces éléments en y intégrant les travaux génétiques consacrés au complexe M. alba et une analyse exploratoire de séquences mitochondriales ND2.
Yarrellii présente une différenciation morphologique et géographique nette vis-à-vis d’alba, mais les deux formes s’hybrident parfois. Les données mitochondriales montrent une structuration partielle qui ne coïncide pas complètement avec les phénotypes. Les données disponibles ne permettent donc actuellement ni de démontrer ni d’exclure une indépendance évolutive justifiant le rang spécifique.
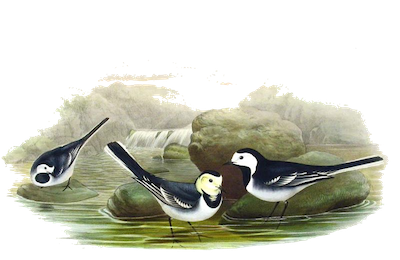
Image de présentation : Planche de Gould XIXe siècle
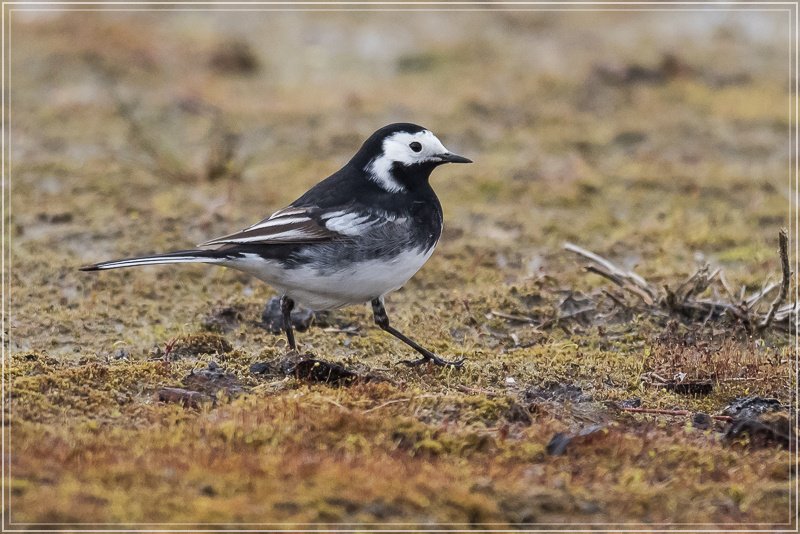
©© byncnd – Chris Steemann – Observado
Une espèce devenue sous-espèce
Gould décrit en 1837 la Bergeronnette de Yarrell comme une espèce, Motacilla yarrellii. Elle est ensuite progressivement intégrée au cours du XXe siècle dans une espèce polytypique, Motacilla alba Linnaeus, 1758, regroupant plusieurs formes géographiques fortement différenciées par leur plumage.
Le statut spécifique est à nouveau proposé par Sangster & al. (1999), dans le cadre d’une conception phylogénétique accordant une importance particulière à la possibilité de distinguer de façon fiable les populations. Evans & Cade (2011), déjà cités dans ma synthèse de 2022 (Deliry 2022), séparent également White et Pied Wagtails, essentiellement dans une perspective d’identification. Les classifications contemporaines retiennent cependant généralement Motacilla alba yarrellii. La question porte donc moins sur l’existence de différences avec alba, bien établies, que sur leur signification évolutive et le degré d’indépendance des deux populations.
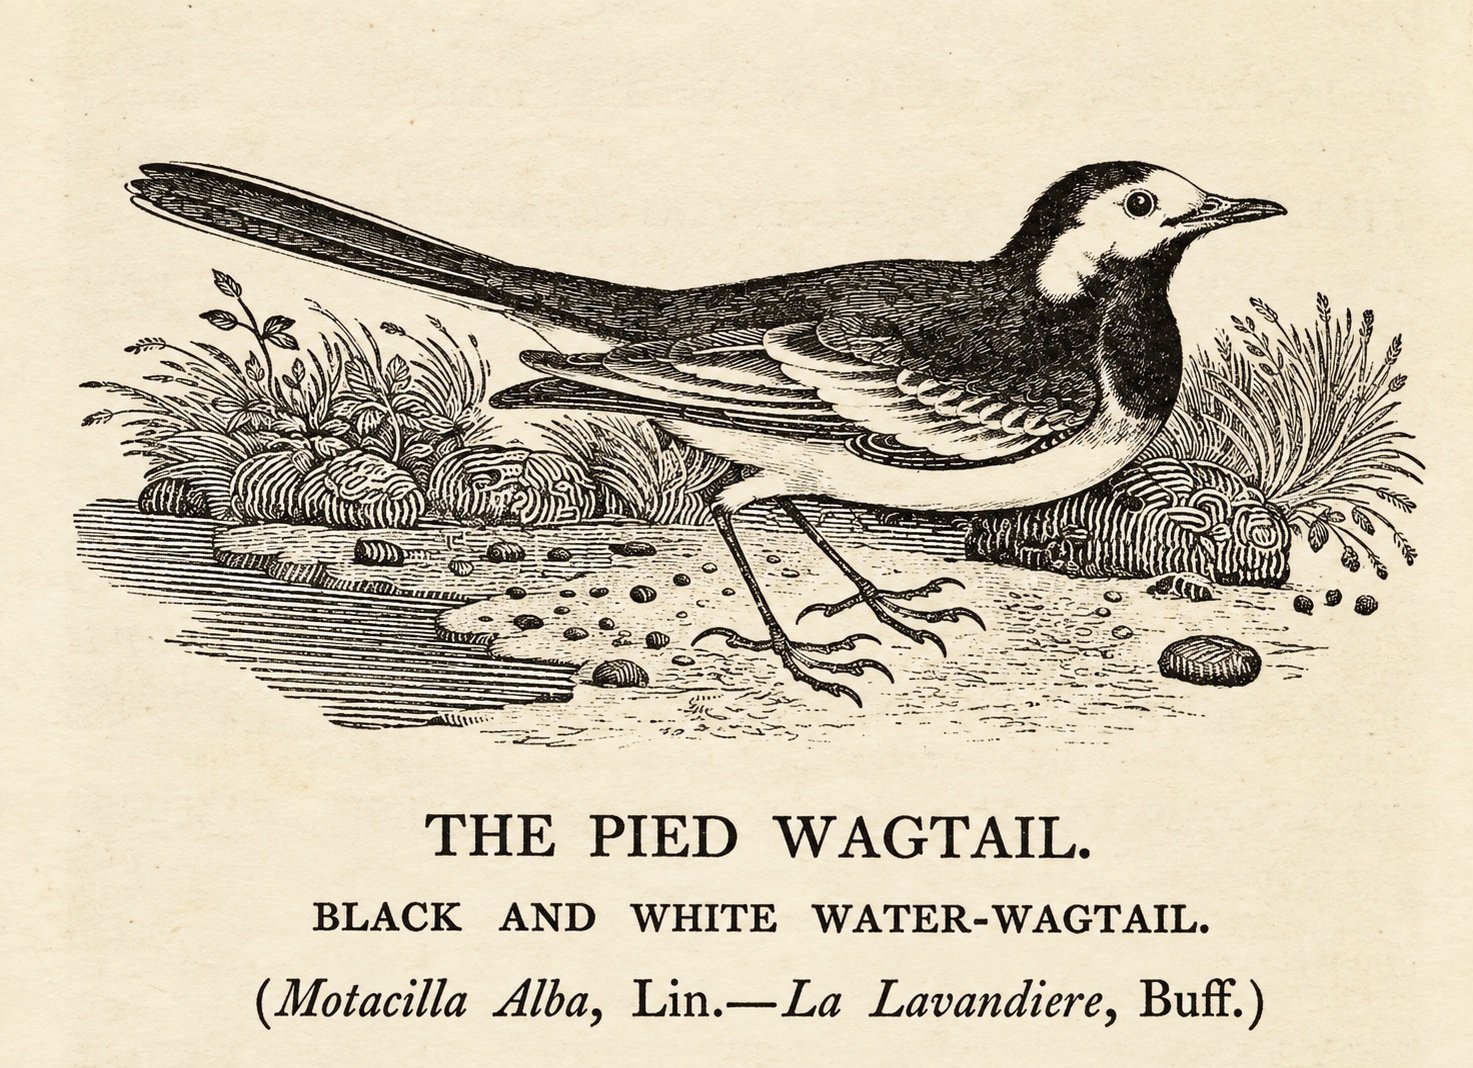
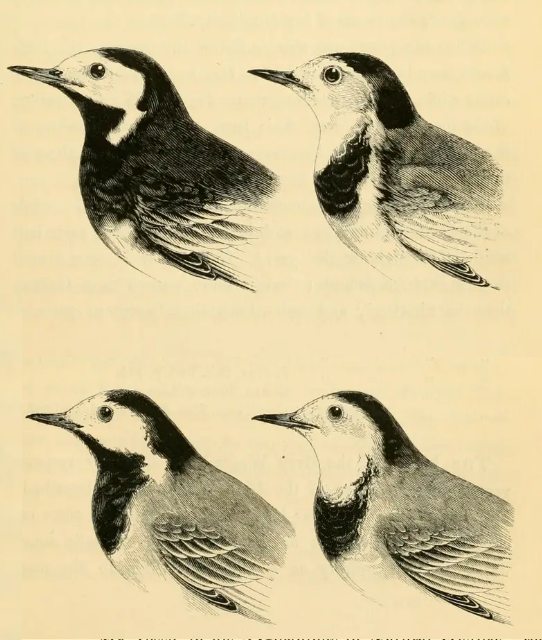
| Gould, Yarrell et la naissance de Motacilla yarrellii En 1837, John Gould distingue la Bergeronnette britannique à dos noir de la Bergeronnette grise continentale et la décrit sous le nom de Motacilla yarrellii. Ce nom rend hommage à William Yarrell (1784–1856), naturaliste britannique avec lequel Gould entretenait des relations régulières. Une source ornithologique ancienne précise que Gould dédia l’espèce à son « ami, W. Yarrell », en hommage à ses qualités de naturaliste. La distinction entre les deux formes est contemporaine de la préparation par Yarrell de son monumental A History of British Birds, publié en livraisons entre 1837 et 1843 (Yarrell 1843). Yarrell y représente les plumages de la Bergeronnette britannique et de Motacilla alba. Ses gravures mettent remarquablement en évidence les caractères qui alimentent encore aujourd’hui leur identification : manteau beaucoup plus sombre chez yarrellii, contraste avec la forme continentale et variations liées au plumage. L’histoire du nom est ainsi étroitement liée aux échanges entre les naturalistes britanniques du XIXe siècle : Gould établit le taxon et le dédie à Yarrell ; Yarrell contribue ensuite à diffuser et illustrer la distinction entre les deux formes dans l’un des grands ouvrages ornithologiques britanniques de son époque. |
Morphologie et identification
La différence la plus visible concerne le manteau du mâle adulte, noir ou noirâtre chez yarrellii et gris chez alba. D’autres caractères concernent le croupion, plus sombre chez yarrellii, les flancs souvent gris ou charbonneux et le contraste entre manteau, calotte et bavette (Evans & Cade 2011, Deliry 2022).
Ces caractères étaient détaillés dans mon article de 2022, qui soulignait également les difficultés concernant les femelles et les jeunes : certains alba présentent des flancs gris, tandis que des yarrellii peuvent être beaucoup moins contrastées. Adriaens & al. (2010) confirment qu’une combinaison de caractères permet d’identifier la plupart des oiseaux, sans permettre une attribution certaine de tous les individus (Adriaens & al. 2010). Une différence vocale a également été signalée, avec un cri généralement décrit comme plus aigu et métallique chez yarrellii. Elle reste moins documentée quantitativement que les caractères de plumage. Je l’ai testée en combinant détermination visuelle et écoute du cri et lorsque les conditions sonores sont bonnes, elle paraît relativement fiable.
Tableau — Principaux caractères d’identification de Motacilla alba yarrellii et M. a. alba.
| Critère | yarrellii typique | alba typique | Prudence |
|---|---|---|---|
| Manteau ♂ adulte | noir/noirâtre | gris cendré | critère généralement très discriminant chez les individus typiques |
| Nuque → manteau | continuité sombre | contraste noir/gris | âge et mue à considérer |
| Croupion | gris très sombre/noirâtre | gris à gris sombre, généralement plus clair | à combiner avec la coloration du manteau |
| Flancs | gris à charbonneux | blanc à gris pâle | chevauchement possible |
| Femelle | manteau gris sombre | généralement plus clair | identification parfois difficile |
| Immature | sombre mais variable | gris variable | prudence élevée |
| Cri | décrit comme plus aigu et métallique | généralement moins aigu | à quantifier bioacoustiquement |
| Phénotype intermédiaire | possible hybride ou variation | possible hybride ou variation | ne pas forcer l’identification |
Synthèse d’après Adriaens & al. (2010), Evans & Cade (2011) et Deliry (2022).
Répartition et phénologie en France
Yarrellii se reproduit principalement en Grande-Bretagne et en Irlande. Sa reproduction devient beaucoup plus localisée sur le continent, des côtes de la mer du Nord au nord-ouest de la France. Ma synthèse de 2022 signalait notamment sa présence reproductrice sporadique dans le Nord-Pas-de-Calais et en Picardie, puis plus occasionnelle vers la Normandie et la Bretagne (Deliry 2022).
Si la Bergeronnette grise s.str. migre parfois sur de longue distance, puisque si les oiseaux du Danemark viennent hiverner en France, d’autres populations descendent en Afrique jusqu’en Gambie ou Sénégal, la Bergeronnette de Yarrell est beaucoup moins mobile. Les populations restent sur les îles Britanniques alors que quelques autres vont jusqu’en Bretagne, Espagne (notamment Cantabrie) voire Maroc (Yésou 1989) et même jusqu’aux Canaries. Un autre pôle d’hivernage pourrait se trouver en Grèce.
Ainsi la Yarrell est-elle également moins migratrice que de nombreuses populations d’alba. Une partie des oiseaux britanniques gagne néanmoins l’Europe occidentale en hiver, notamment la France, la péninsule Ibérique et plus occasionnellement l’Afrique du Nord (Deliry 2022). En France, cette différence est particulièrement perceptible sur la façade occidentale. Yésou (1989) montre que dans la région des Sables-d’Olonne, yarrellii est principalement présente d’octobre à mars et devient pratiquement la seule forme observée entre novembre et février.
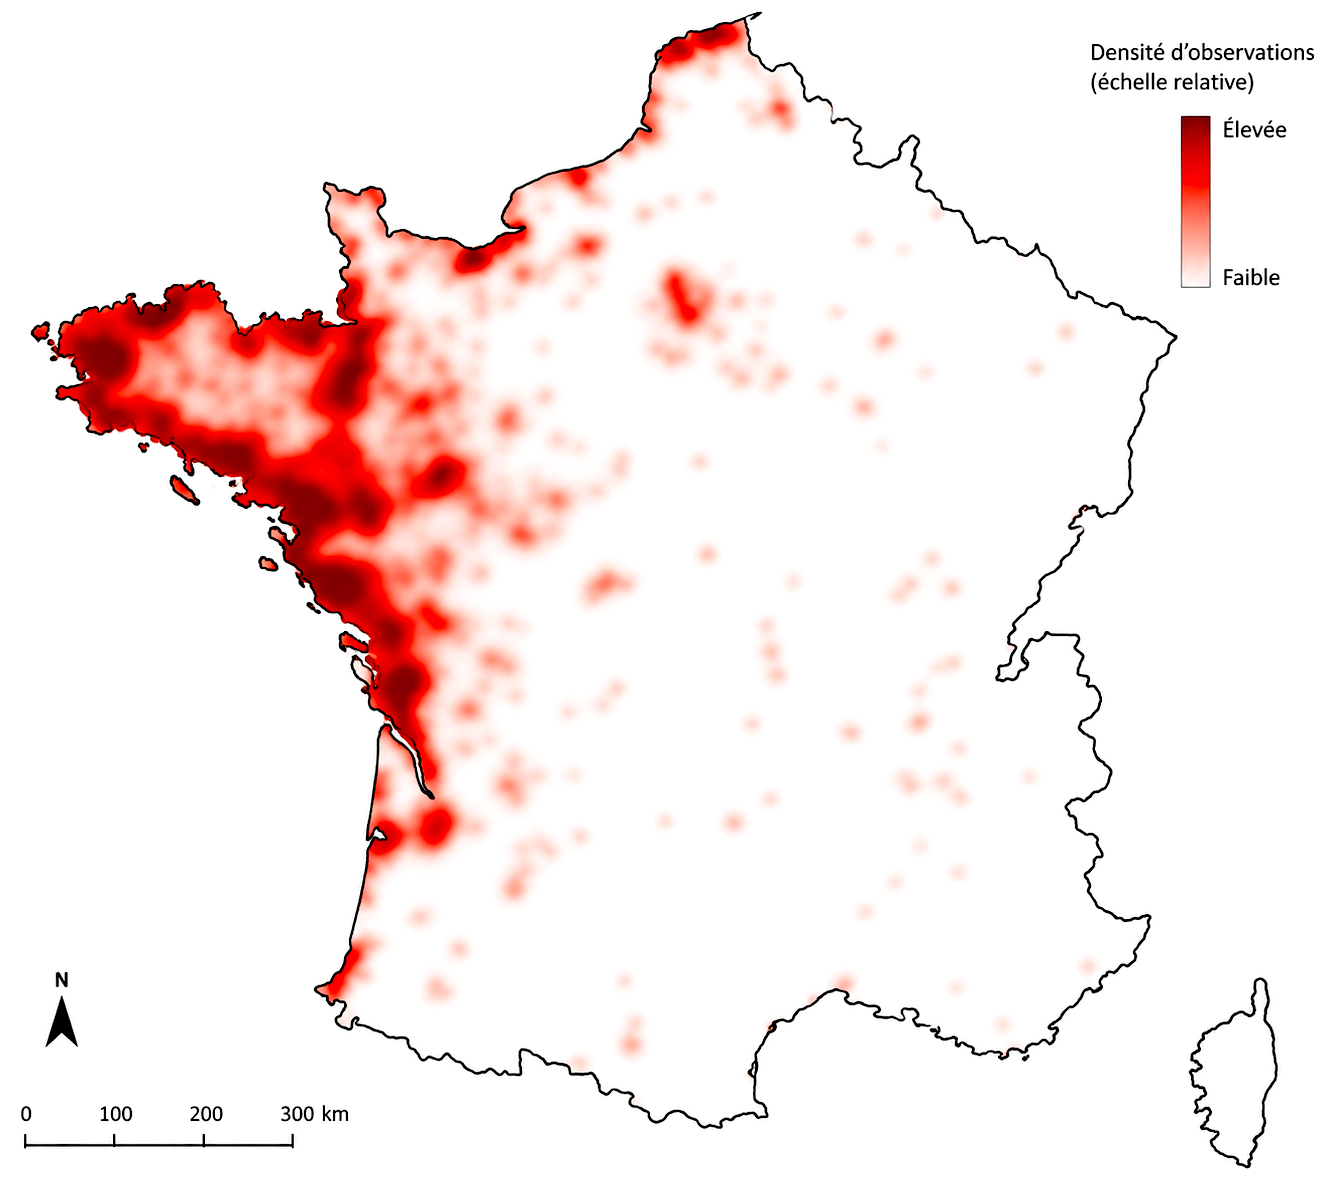
Mon article de 2022 signalait également des observations hivernales de la Manche à la Vendée et à la Charente-Maritime, ainsi que des mentions plus dispersées à l’intérieur du pays et jusque dans le Sud (Debru 1956, Deliry 2022). Une partie de cette distribution pourrait rester sous-estimée, notamment lorsque les oiseaux sont enregistrés simplement sous Motacilla alba. Cette hypothèse demanderait toutefois à être testée par des données standardisées.
© Etalab
Hybridation avec alba
La reproduction continentale met régulièrement yarrellii en contact avec alba. Des couples mixtes et leur descendance sont connus dans plusieurs pays européens (Adriaens & al. 2010). La littérature française comprend notamment les descriptions d’hybrides de Sueur (1982) et de descendants de croisements étudiés par Triplet (1983). Ma synthèse de 2022 signalait également plusieurs cas français de reproduction en couples mixtes, ainsi qu’une nidification jusque dans le Jura à Rémoray en 1996.
L’hybridation ne démontre pas à elle seule la conspécificité, puisque des espèces reconnues peuvent échanger des gènes. Elle établit cependant que l’isolement reproducteur entre alba et yarrellii n’est pas complet (Helbig & al. 2002). L’ampleur réelle du flux génique reste insuffisamment connue.
Ce que montre la génétique
Les principales études génétiques consacrées au complexe Motacilla alba ne testent pas toutes directement yarrellii.
Pavlova & al. (2005) montrent une faible correspondance entre lignées mitochondriales et formes de plumage, mais sans inclure yarrellii. Li & al. (2016) étudient en revanche les neuf sous-espèces reconnues, avec 273 individus provenant de 45 localités. Yarrellii est cependant représentée par seulement cinq individus. Leur analyse distingue plusieurs lignées mitochondriales faiblement divergentes qui ne correspondent pas aux limites subspécifiques. Les auteurs opposent ainsi une importante diversification des plumages à une structuration mitochondriale beaucoup plus faible (Li & al. 2016). Semenov & al. (2018) retrouvent une faible structuration nucléaire du complexe avec 17 microsatellites, mais leur échantillonnage ne comprend pas yarrellii. Enfin, Semenov & al. (2021) montrent chez alba–personata que d’importantes différences de plumage peuvent être associées à quelques régions génomiques malgré l’existence d’introgression.
Ces travaux décrivent donc le contexte évolutif du complexe, mais ne constituent pas une étude génomique directe d’alba–yarrellii.
J’ai complété cette synthèse par une analyse exploratoire des séquences publiques du gène mitochondrial ND2 attribuées à M. a. alba, M. a. yarrellii et M. a. leucopsis. Elle ne vise pas à reconstruire la phylogénie du complexe mais à examiner la correspondance entre lignées mitochondriales et phénotypes.
Le résultat montre une structuration mitochondriale partielle. Trois des cinq yarrellii examinées — KT031329.1, KT031288.1 et KT031294.1 — constituent un même ensemble soutenu (83–89), les deux dernières étant encore plus étroitement associées (93–97). Une majorité des yarrellii disponibles partage donc une même lignée mitochondriale. Un groupe exclusivement constitué de plusieurs leucopsis bénéficie parallèlement d’un support élevé (100). Cependant, ces regroupements ne comprennent pas tous les individus des taxons concernés. Deux autres yarrellii appartiennent à une partie différente de l’arbre : KT031291.1 est proche de deux alba, tandis que KT031335.1 se situe au voisinage d’un ensemble dominé par leucopsis. Ni yarrellii ni leucopsis ne sont donc globalement monophylétiques.
Une autre lecture peut être envisagée. L’apparente homogénéité phénotypique de yarrellii pourrait masquer plusieurs histoires génétiques. Une partie des individus présentant ce phénotype se regroupe dans une même lignée mitochondriale bien soutenue, tandis que d’autres individus morphologiquement attribués à yarrellii se placent parmi des lignées partagées avec d’autres formes. Le phénotype yarrellii pourrait ainsi avoir été acquis ou maintenu sur des fonds génétiques différents. Dans cette hypothèse, certains individus extérieurement semblables au groupe mitochondrialisé yarrellii ne partageraient pas nécessairement avec lui la même histoire évolutive. La ressemblance morphologique constituerait alors un « leurre » si elle était interprétée comme la preuve d’une origine généalogique unique. L’arbre ND2 ci-dessous ne permet cependant pas de déterminer si le groupe de trois yarrellii correspond réellement à une entité génomique plus différenciée. Il montre seulement que ces trois individus partagent une lignée mitochondriale que ne partagent pas les deux autres yarrellii de l’échantillon. Tester cette hypothèse nécessiterait de comparer leurs génomes nucléaires et les régions génétiques impliquées dans le plumage.
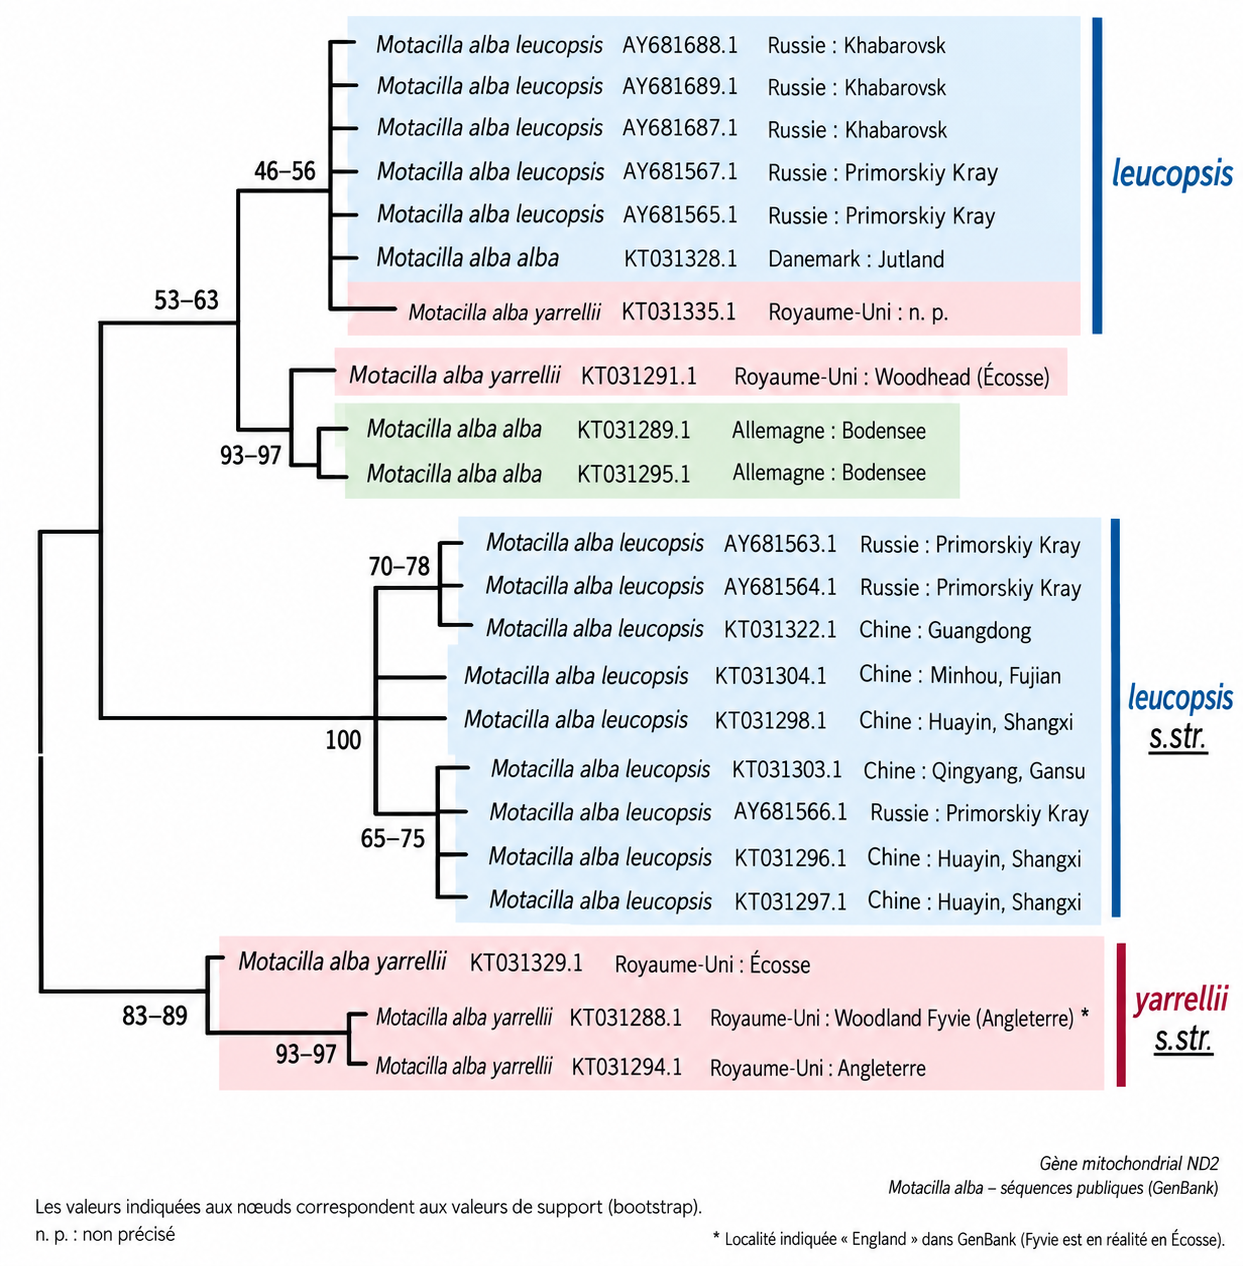
L’arbre ne traduit donc pas une absence totale de structuration génétique : des lignées mitochondriales sont partiellement associées à certains phénotypes, tandis que d’autres sont partagées entre plusieurs formes.
Ce résultat est cohérent avec Li & al. (2016), mais ne constitue pas une confirmation indépendante puisque certaines des séquences sont issues du matériel déjà utilisé dans cette étude. Le déséquilibre de l’échantillonnage, notamment la forte représentation de leucopsis, impose également de rester prudent. Cette configuration peut résulter d’une divergence récente, du maintien de polymorphismes ancestraux, du tri incomplet des lignées, d’introgressions mitochondriales, de phénotypes convergents mais génétiquement différents ou de plusieurs de ces mécanismes (Pavlova & al. 2005, Li & al. 2016, Semenov & al. 2021). Un seul marqueur mitochondrial ne permet pas de les départager et la recherche d’autres marqueurs pertinents révèle qu’ils ne sont pas significativement disponibles. Les données publiées ne fournissent actuellement pas de jeu de marqueurs nucléaires permettant de tester spécifiquement cette hypothèse chez alba–yarrellii.
Statut taxonomique
Plusieurs niveaux de différenciation apparaissent ainsi chez yarrellii : morphologie propre, distribution principalement britannique et irlandaise, comportement migratoire particulier et structuration mitochondriale partielle.
En parallèle, les deux formes s’hybrident et les données mitochondriales ne montrent pas de séparation complète entre yarrellii et alba si on se base sur Li & al. (2016). La non-monophylie mitochondriale ne suffit cependant pas à rejeter le rang spécifique, pas plus que le regroupement de trois des cinq yarrellii ne suffit à le démontrer.
Le traitement spécifique proposé notamment par Sangster & al. (1999) repose principalement sur la possibilité de distinguer de façon fiable les populations. Les données génétiques actuellement disponibles ne constituent pas un test génomique suffisant de l’indépendance évolutive de yarrellii, ni même de prouver que certaines yarrellii ne le seraient que phénotypiquement, « mais pas » génétiquement.
Conclusion
La Bergeronnette de Yarrell fut décrite comme espèce par Gould en 1837 avant d’être intégrée à l’espèce polytypique Motacilla alba. Elle présente une combinaison cohérente de caractères morphologiques, géographiques et phénologiques qui permet généralement de la distinguer d’alba.
L’analyse mitochondriale apporte une image plus complexe. L’examen du ND2 retrouve une structuration partielle : trois des cinq yarrellii forment un groupe soutenu, tandis que deux autres appartiennent à des lignées partagées avec d’autres formes. Cette configuration concorde avec la phylogéographie de Li & al. (2016), dans laquelle les lignées mitochondriales traversent les limites définies par le plumage.
Les données disponibles ne permettent donc ni de démontrer une lignée yarrellii entièrement indépendante, ni de conclure à l’absence de différenciation génétique. Une étude génomique spécifiquement consacrée à alba, yarrellii et à leurs populations de contact serait nécessaire pour mesurer leur divergence et leur flux génique.
En l’état actuel des connaissances, Motacilla alba yarrellii demeure le traitement généralement adopté (AviList 2026, etc.). Sa différenciation morphologique, géographique et phénologique fournit des arguments en faveur d’une évolution propre, mais son degré d’indépendance vis-à-vis d’alba reste insuffisamment testé par les données génomiques pour justifier actuellement son traitement comme espèce distincte. Elle constitue en tout état de cause une sous-espèce fortement différenciée.
Sur le plan naturaliste, la distinction est très utile. Mon article de 2022 soulignait déjà que l’enregistrement indifférencié sous Motacilla alba pouvait masquer la distribution et la phénologie de yarrellii. Lorsque les conditions permettent une détermination fiable, le maintien de l’information au niveau alba (surtout !) ou yarrellii est donc souhaitable et ceci doit être encouragé sur les plateformes naturalistes de partage des données.
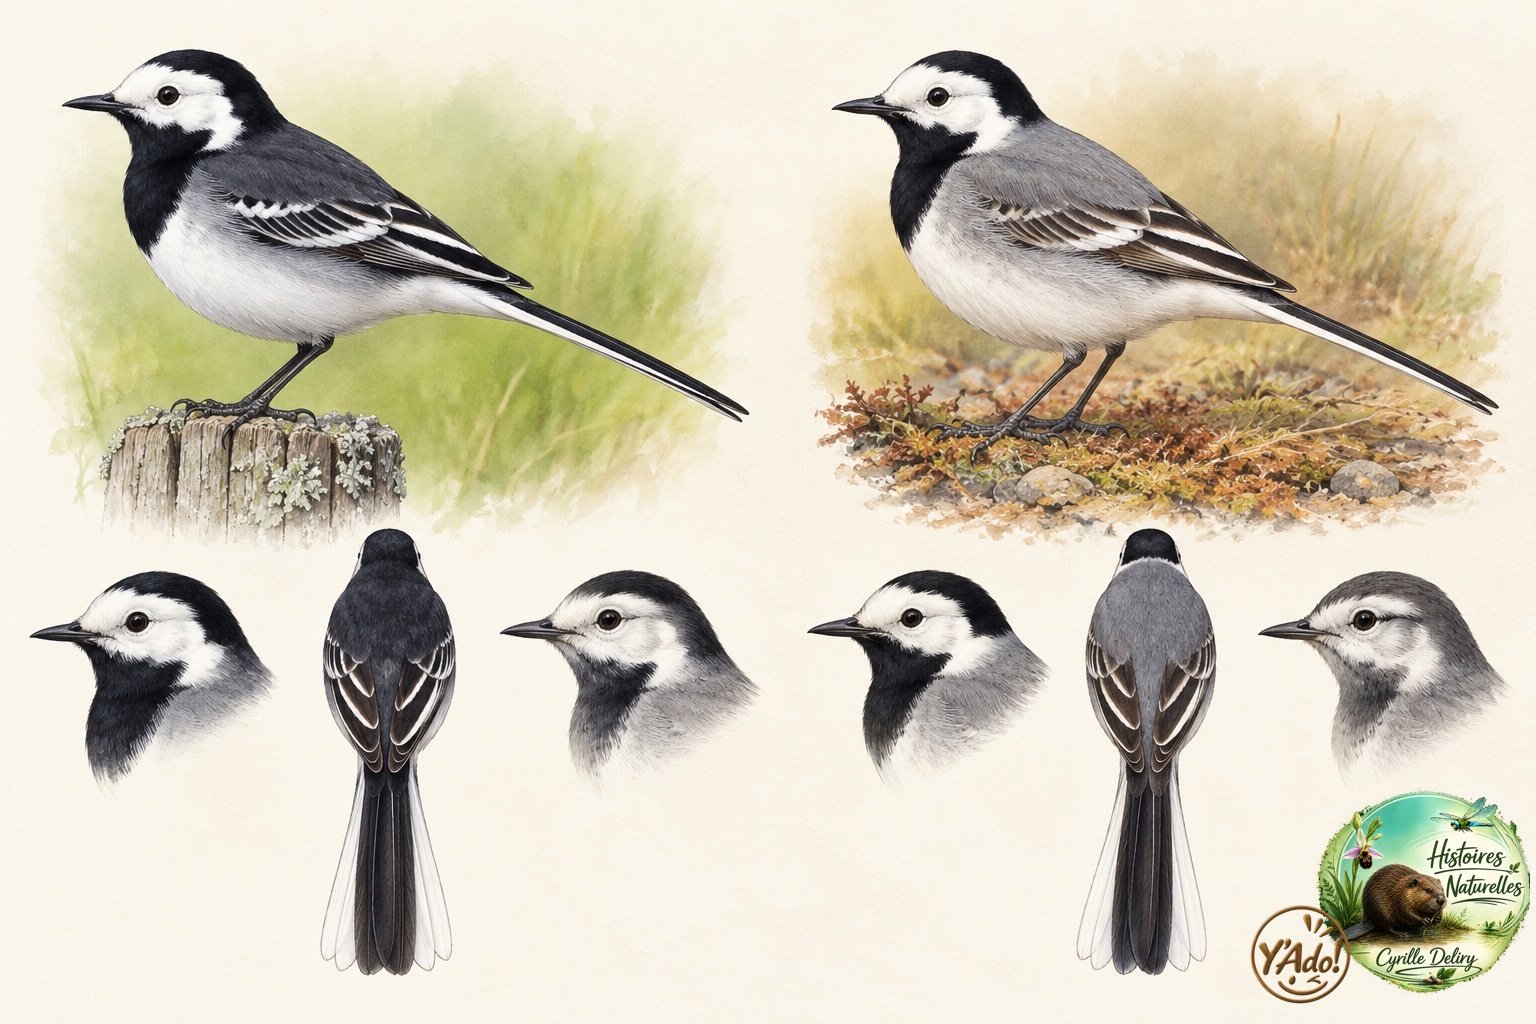
Les deux sous-espèces yarrellii et alba
Montage selon mes consignes et ma documentation – Y’Ado!
©© byncsa – Cyrille Deliry
Bibliographie
- Adriaens P., Bosman D. & Elst J. 2010 – White Wagtail and Pied Wagtail: a new look. – Dutch Birding, 32 (4) : 229-250.
- [AviList 2026] – AviList: The Global Avian Checklist, v2025b. – AviList, en ligne.
- Bawedin V. 2003 – Précisions sur le statut de la Bergeronnette de Yarrell Motacilla alba yarrellii en Picardie maritime. – L’Avocette, numéro spécial.
- Bewick T. 1797 – History of British birds. – Newcastle, Hodgson.
- Debru H. 1956 – Motacilla alba yarrellii dans le département de l’Aude. – L’Oiseau et R.F.O., 26 : 157-158.
- Deliry C. 2022 – La Bergeronnette de Yarrell, probablement une bonne espèce. – Nature Life, 9 : 1-7. – PDF
- Dubois P.J. & al. 2012 – Notes d’ornithologie française. Première mise à jour du Nouvel Inventaire des oiseaux de France. – Ornithos.
- Evans L.G. & Cade M. 2011 – The separation of White and Pied Wagtails. – Identification Paper, British Birding Association.
- Gould J. 1837 – Observations on some Species of the Genus Motacilla of Linnaeus. – Magazine of Natural History, n.s. 1 : 459-461.
- Helbig A.J. & al. 2002 – Guidelines for assigning species rank. – Ibis, 144 : 518-525.
- Li X. & al. 2016 – Shaped by uneven Pleistocene climate: mitochondrial phylogeographic pattern and population history of White Wagtail Motacilla alba. – Journal of Avian Biology, 47 : 263-274.
- LPO Normandie – Bergeronnette de Yarrell (Motacilla alba yarrellii). – Inventaire des oiseaux de Normandie.
- Pavlova A. & al. 2005 – Mitochondrial DNA and plumage evolution in the White Wagtail Motacilla alba. – Journal of Avian Biology, 36 : 322-336.
- Provost S. 2013 – Migrations sur la Grande Île de Chausey, automne 2012. – Groupe Ornithologique Normand : 38 pp.
- Rousseau E. & al. 2015 – Liste commentée des oiseaux de l’Aude. Version 1. – LPO Aude, Aude Nature.
- Sangster G. & al. 1999 – Dutch avifaunal list: species concepts, taxonomic instability, and taxonomic changes in 1977-1998. – Ardea, 87 : 139-165.
- Semenov G.A. & al. 2018 – Extensive phenotypic diversification coexists with little genetic divergence and a lack of population structure in the White Wagtail subspecies complex (Motacilla alba). – Journal of Evolutionary Biology, 31 : 1093-1108.
- Semenov G.A. & al. 2021 – Asymmetric introgression reveals the genetic architecture of a plumage trait. – Nature Communications, 12 : 1019.
- Sueur F. 1982 – Description des hybrides des sous-espèces alba et yarrellii de la Bergeronnette grise Motacilla alba. – Alauda, 50 : 148.
- Sueur F. 1991 – Hivernage de la Bergeronnette de Yarrell Motacilla alba yarrellii dans le Ponthieu (Somme). – L’Avocette, 15.
- Triplet P. 1983 – Nouvelles données sur le plumage des descendants de croisements Motacilla alba alba × Motacilla alba yarrellii. – L’Oiseau et R.F.O., 53 : 179-180.
- Yarrell W. 1843 – A history of British Birds. – London, John Van Voorst, vol. 1.
- Yésou P. 1989 – Les sous-espèces de la Bergeronnette grise dans la région des Sables-d’Olonne. – La Gorgebleue, 9.
Annexe 1 – Origine géographique des séquences ND2
Tableau — Origine géographique des séquences ND2 utilisées dans mon analyse phylogénétique.
| Accession GenBank | Taxon | Localité |
|---|---|---|
| AY681689.1 | Motacilla alba leucopsis | Russie : Khabarovsk |
| AY681688.1 | Motacilla alba leucopsis | Russie : Khabarovsk |
| AY681687.1 | Motacilla alba leucopsis | Russie : Khabarovsk |
| AY681567.1 | Motacilla alba leucopsis | Russie : Primorskiy Kray |
| AY681566.1 | Motacilla alba leucopsis | Russie : Primorskiy Kray |
| AY681565.1 | Motacilla alba leucopsis | Russie : Primorskiy Kray |
| AY681564.1 | Motacilla alba leucopsis | Russie : Primorskiy Kray |
| AY681563.1 | Motacilla alba leucopsis | Russie : Primorskiy Kray |
| KT031322.1 | Motacilla alba leucopsis | Chine : Guangdong |
| KT031304.1 | Motacilla alba leucopsis | Chine : Minhou, Fujian |
| KT031303.1 | Motacilla alba leucopsis | Chine : Qingyang, Gansu |
| KT031298.1 | Motacilla alba leucopsis | Chine : Huayin, Shangxi |
| KT031297.1 | Motacilla alba leucopsis | Chine : Huayin, Shangxi |
| KT031296.1 | Motacilla alba leucopsis | Chine : Huayin, Shangxi |
| KT031335.1 | Motacilla alba yarrellii | Royaume-Uni |
| KT031329.1 | Motacilla alba yarrellii | Royaume-Uni : Écosse |
| KT031294.1 | Motacilla alba yarrellii | Royaume-Uni : Angleterre |
| KT031291.1 | Motacilla alba yarrellii | Royaume-Uni : Woodhead, Écosse |
| KT031288.1 | Motacilla alba yarrellii | Royaume-Uni : Woodland Fyvie, Angleterre* |
| KT031328.1 | Motacilla alba alba | Danemark : Jutland |
| KT031295.1 | Motacilla alba alba | Allemagne : Bodensee |
| KT031289.1 | Motacilla alba alba | Allemagne : Bodensee |
* La localité « Woodland Fyvie, England » est celle indiquée dans les données GenBank ; Fyvie se situe en Écosse.
Annexe 2 – Présentation résumée de la Bergeronnette de Yarrell par régions de France
- Non documentée pour l’Alsace, l’Auvergne, la Bourgogne, la Champagne-Ardenne, le Limousin et la Lorraine. L’espèce y paraît accidentelle ou très rare.
- En Aquitaine, elle est rare mais régulière en migration et en hivernage, essentiellement le long de la façade atlantique. Sa présence est ancienne : un spécimen provenant du Cap-Ferret fut collecté le 12 octobre 1873. Les suivis migratoires confirment un passage automnal : au Cap-Ferret, en 2005, des yarrellii furent identifiées entre le 10 octobre et le 6 novembre. L’hivernage atteint régulièrement la Gironde et probablement le Pays basque (Deliry 2022). La région paraît ainsi constituer la prolongation méridionale de l’axe d’hivernage atlantique français.
- La Basse-Normandie constitue l’une des principales régions françaises pour yarrellii. Elle y est régulière et localement commune en hiver, particulièrement dans la Manche et le Cotentin. Les premières arrivées sont observées dès septembre, les effectifs augmentent en octobre et la présence est maximale en hiver ; le départ s’effectue principalement en mars (LPO Normandie). Aux îles Chausey, elle est notamment détectée parmi les Bergeronnettes grises au passage automnal à partir d’octobre (Provost 2013). La reproduction y est très rare et irrégulière et elle concerne essentiellement le Cotentin. Elle peut concerner aussi bien des oiseaux de type yarrellii que des couples mixtes avec alba (LPO Normandie). Cette combinaison d’un hivernage important et d’une nidification marginale illustre bien le statut français de la forme. La base régionale ODIN rassemble actuellement plus d’un millier d’observations à l’échelle de la Normandie, réparties dans 330 communes, ce qui confirme que yarrellii n’y constitue nullement une simple rareté accidentelle.
- La Bretagne représente, avec la Normandie, l’un des principaux secteurs français d’hivernage. Yarrellii y est régulière et peut devenir localement commune. Les oiseaux apparaissent principalement à partir de fin septembre-début octobre, puis sont observés pendant tout l’hiver avant le mouvement de retour de fin d’hiver et de début de printemps. Des dortoirs comprenant plusieurs centaines d’oiseaux ont notamment été rapportés en Ille-et-Vilaine ou dans le Finistère, notamment à Brest. La proximité des îles Britanniques explique cette importance hivernale. La reproduction est très rare et irrégulière. Des couples mixtes yarrellii × alba ont notamment été signalés. La Bretagne marque approximativement la limite occidentale et méridionale de la petite zone française où une reproduction occasionnelle peut être envisagée (Deliry 2022).
- Dans le Centre, la Bergeronnette de Yarrell est très rare, essentiellement de passage ou hivernante. La région peut être atteinte par des oiseaux pénétrant à l’intérieur des terres depuis la façade atlantique et notamment par l’axe de la Loire. Cette pénétration reste toutefois beaucoup moins importante que sur le littoral ; la basse vallée de la Loire constitue manifestement un axe privilégié (Deliry 2022).
- Je n’ai trouvé aucune mention de Corse (Deliry 2022).
- La Bergeronnette de Yarrell est très rare en Franche-Comté, mais la région possède un cas particulièrement intéressant : une nidification à Rémoray en 1996, dans le massif jurassien, concernant un croisement avec la Bergeronnette grise alba (Deliry 2022). Ce cas montre que des individus peuvent exceptionnellement séjourner et se reproduire très loin de la petite zone de reproduction régulière ou occasionnelle du nord-ouest de la France.
- La Bergeronnette de Yarrell est migratrice et hivernante régulière en Haute-Normandie, quoique généralement moins abondante qu’en Basse-Normandie. Elle arrive à l’automne, hiverne dans la région et repart principalement en mars. Sa présence est particulièrement nette sur le littoral, dans l’estuaire de la Seine et dans les milieux urbains. Dès 1938, Olivier la considérait comme migratrice et hivernante régulière et signalait que quelques couples pouvaient occasionnellement se reproduire (LPO Normandie). Les données contemporaines confirment cependant que la reproduction reste exceptionnelle et irrégulière.
- En Île-de-France, la Bergeronnette de Yarrell est rare mais régulière en petit nombre, essentiellement en migration et en hiver. Sa présence illustre la pénétration occasionnelle de la population hivernante côtière vers le Bassin parisien (Deliry 2022). La reproduction y est exceptionnelle. Plusieurs cas historiques ont été signalés dans la région parisienne, mais ils ne traduisent pas l’installation d’une population reproductrice. L’essentiel des observations actuelles doit donc être interprété comme concernant des migrateurs ou des hivernants.
- Elle est rare à très rare en Languedoc-Roussillon, mais probablement plus régulière qu’on ne l’a longtemps supposé. L’Aude fournit une mention historique publiée par Debru (1956), et les observations y sont devenues plus nombreuses depuis les années 2000 (Rousseau & al. 2015, Deliry 2022). L’intérêt historique est plus ancien encore : les ornithologues du XIXe siècle connaissaient déjà yarrellii dans le Midi, notamment lors des passages d’automne et de printemps dans l’Aude et l’Hérault. Les données modernes concernent surtout ces migrations et l’hiver.
- Elle est très rare en Midi-Pyrénées, essentiellement de passage et occasionnellement hivernante. Sa présence est connue de longue date. La littérature ornithologique pyrénéenne du XIXe siècle mentionnait déjà des passages au printemps et à l’automne et rapporte notamment la capture d’un mâle près de Toulouse en octobre 1872. Ces observations anciennes sont intéressantes car elles montrent que l’apparition de yarrellii dans le Sud-Ouest intérieur n’est pas un phénomène récent.
- Le Nord-Pas-de-Calais constitue avec la Picardie la principale région française pour la reproduction de yarrellii. Elle y est régulière, particulièrement sur le littoral, à la fois migratrice, hivernante et nicheuse très rare. Sa situation immédiatement en face des populations britanniques et au contact de l’extension continentale de la forme explique ce statut. La reproduction reste cependant encore marginale à l’échelle régionale. Elle peut concerner des couples mixtes avec alba, mais des couples de deux yarrellii ont également été documentés, notamment à Calais. La région représente ainsi l’extrémité sud-occidentale de la petite aire continentale de reproduction qui s’étend depuis les Pays-Bas et la Belgique vers le nord de la France (Deliry 2022).
- La Bergeronnette de Yarrell est régulière dans les Pays-de-la-Loire en hiver et localement commune, principalement sur le littoral vendéen et dans la basse vallée de la Loire. La Vendée est particulièrement intéressante : dans la région des Sables-d’Olonne, Yésou (1989) a montré l’importance de yarrellii parmi les Bergeronnettes grises hivernantes. Ma synthèse de 2022 souligne même que, dans certains secteurs, elle peut devenir majoritaire voire constituer la seule forme de Bergeronnette « grise » identifiée en plein hiver (Yésou 1989, Deliry 2022). Le cycle annuel est dominé par l’arrivée automnale, l’hivernage puis le départ prénuptial. L’espèce pénètre également à l’intérieur par la basse vallée de la Loire. La reproduction n’est pas connue dans la région.
- La Picardie est l’une des régions françaises les mieux documentées. Yarrellii peut être observée dans toute la région mais n’est régulièrement présente tout au long de son cycle annuel que sur le littoral picard, où elle est à la fois migratrice, hivernante et nicheuse (Bawedin 2003). Le passage prénuptial s’étend principalement de mars à mai, avec un maximum en avril ; le passage postnuptial se manifeste surtout de septembre à octobre. L’hivernage est régulier sur la côte et notamment dans le Ponthieu (Sueur 1991, Bawedin 2003). La reproduction demeure très limitée : elle concerne seulement quelques couples, avec une part importante de couples mixtes avec alba. J’avais retenu un ordre de grandeur de 1 à 5 couples sur le littoral picard (Deliry 2022). La Picardie constitue ainsi une véritable zone marginale de reproduction plutôt qu’une simple région d’apparition accidentelle.
- En Poitou-Charentes, elle est hivernante régulière mais en effectifs modestes, probablement sensiblement sous-détectée. La Charente-Maritime appartient au prolongement naturel de l’axe d’hivernage vendéen. Sa présence y est connue anciennement : un spécimen provenant de Meschers-sur-Gironde fut collecté le 15 novembre 1910. Les observations sont surtout automnales et hivernales. En Deux-Sèvres, plusieurs yarrellii ont été identifiées en hiver dans le secteur de Niort. Une observation proposée en juin y est beaucoup plus atypique (Deliry 2022).
- En Provence-Alpes-Côte d’Azur, elle est rare à très rare, principalement de passage ou hivernante. Des individus ont notamment été signalés dans le Var (Deliry 2022). Les observations du Sud-Est semblent plus nombreuses depuis le début du XXIe siècle, mais il reste difficile de distinguer une augmentation réelle d’une amélioration de l’identification et de la saisie des sous-espèces.
- La Bergeronnette de Yarrell est rare mais probablement régulière en très petit nombre lors des migrations et en hiver en Rhône-Alpes. Plusieurs oiseaux ont notamment été identifiés en Isère (Deliry 2022), et les bases régionales actuelles continuent à documenter sa présence. Les observations disponibles indiquent une présence automnale vers novembre, ainsi qu’un passage prénuptial dont les données disponibles suggèrent un maximum vers mars (Deliry 2022).
Le cœur français se trouve sur les façades de la Manche et de l’Atlantique. En Normandie, yarrellii est explicitement considérée comme une hivernante commune, arrivant en septembre et repartant en mars ; les données 2018-2022 concentrent effectivement les observations entre octobre et mars. Bretagne et Pays de la Loire prolongent cette zone d’hivernage vers le sud, puis les effectifs deviennent progressivement plus faibles en Poitou-Charentes et Aquitaine. La migration postnuptiale devient perceptible à partir de septembre-octobre. Chausey donne des oiseaux à partir d’octobre ; au Cap-Ferret, les oiseaux identifiés lors du suivi de 2005 passent entre le 10 octobre et le 6 novembre. L’hivernage couvre principalement novembre-février, puis le mouvement prénuptial devient sensible en mars et peut se poursuivre en avril, voire mai dans le Nord. À l’échelle du pays, l’espèce doit être considérée comme une hivernante régulière, parfois commune et pouvant se rassembler en dortoirs spectaculaires comme à Brest par exemple. Les observations hivernales et printanières paraissent en augmentation dans le Sud-Est du pays (Dubois & al. 2012). Pour la reproduction, le gradient est presque inversement proportionnel à l’éloignement des îles Britanniques : Nord-Pas-de-Calais → Picardie → Normandie → Bretagne, avec raréfaction rapide vers le sud. À l’échelle française, la reproduction demeure très rare et concerne avec une fréquence plus grande des couples mixtes yarrellii × alba. Le cas franc-comtois de Rémoray montre que des reproductions ponctuelles peuvent se produire très loin de cette frange côtière.
Citation – Deliry C. 2026 – Motacilla yarrellii Gould, 1837 : espèce distincte ou sous-espèce fortement différenciée ? – Histoires Naturelles, Écrire la Nature en ligne, n°4, 17 septembre 2026.
NDLR – Cet article est parti d’une volonté de refonte d’un document préparé en 2022 sur le même thème (Deliry 2022), ici largement révisé et complété.
Proposez vos corrections ou ajustements par @mail – Vos contributions seront précisées dans l’article