Histoires Naturelles, Écrire la Nature en ligne n°5 – 19 septembre 2026
Parole de Libellules
Deliry Cyrille
Discordances entre ADN mitochondrial et nucléaire, hybridations anciennes et biogéographie chez les Caloptéryx de la zone Paléarctique
Les Calopteryx, ces demoiselles aux belles ailes souvent vivement colorées qui fréquentent les cours d’eau, semblent offrir au naturaliste des espèces relativement bien reconnaissables. Pourtant, lorsqu’on cherche à reconstituer leurs relations de parenté à partir de leur ADN, une difficulté apparaît : les arbres généalogiques obtenus à partir des marqueurs génétiques, mitochondrial COI et nucléaires ITS1 ne racontent pas exactement la même histoire.
Alors que le marqueur nucléaire retrouve plusieurs ensembles assez conformes aux espèces traditionnellement reconnues, le marqueur mitochondrial révèle des lignées parfois profondément divergentes au sein d’une même espèce et, inversement, des rapprochements inattendus entre espèces différentes.
Ces discordances pourraient-elles conserver la trace d’anciennes hybridations, au cours desquelles des lignées mitochondriales transmises par les femelles auraient franchi les frontières entre espèces ? C’est cette possibilité que je propose d’explorer à travers l’hypothèse des «Ulriques mitochondriales» : des lignées maternelles dont l’histoire biogéographique ne coïnciderait pas nécessairement avec celle des espèces auxquelles elles appartiennent aujourd’hui.
L’analyse comparée des arbres COI et ITS1 permet d’examiner cette hypothèse, mais aussi d’en préciser les limites et de déterminer les recherches nécessaires pour la mettre à l’épreuve.
Quarante années de terrain et de recherches sur les Calopteryx et peu de publications
Mon intérêt pour les Calopteryx remonte à plus de quarante ans. Depuis les années 1980, j’étudie leurs populations, principalement en France et, plus récemment, dans les îles tyrrhéniennes et le bassin méditerranéen. Mes observations reposent sur l’examen systématique de plusieurs individus des deux sexes dans chaque localité, plutôt que sur la détermination de spécimens isolés. Je monte le projet Calopteryx au sein du GRPLS en 1990 et suivront des recherches assidues sur le terrain.
M’appuyant notamment sur les travaux de Maibach (1985, 1986, 1987) et sur les clés de détermination suisses (non publiées), puis sur celle de Wendler & Nuß (1997), j’ai accordé une attention particulière à la coloration de la face ventrale du thorax des femelles, caractère souvent négligé dans les déterminations courantes. Dès 1993, je publiais une première et brève contribution sur la variabilité des populations de Calopteryx en Savoie et en Isère (Deliry 1993).
Dès les années 1990, mes échanges avec Philippe Jourde, aujourd’hui impliqué dans le pilotage de Faune-France, ont nourri mes premières hypothèses sur la variabilité des Calopteryx de France et conforté cette approche populationnelle.
Dans les années 2000, l’encadrement d’une stagiaire, Mélanie Turiault, constitua un autre épisode important. Ce travail l’introduisit à l’étude des Calopteryx et, plus largement, des Odonates. Elle a depuis poursuivi cette voie en Allemagne, notamment dans une perspective muséologique, jusqu’à publier sur les types de Calopterygidae conservés au Museum für Naturkunde de Berlin (Turiault 2016). Cette continuité entre terrain, collections et taxonomie fait écho à mes propres préoccupations.
Lorsque je découvre au printemps 2026 l’étude de Dumont et collaborateurs publiée l’année précédente, ma première réaction est faite à la fois de surprise et de réserve. Les auteurs placent dix-sept sous-espèces de Calopteryx splendens en synonymie avec la forme nominale et n’en retiennent que deux comme valides. Mes analyses confirment une part importante de leur constat : le complexe splendens est effectivement très peu résolu par les marqueurs étudiés. Je reste cependant plus réservé sur les conséquences taxonomiques à en tirer, notamment lorsque des ensembles morphologiques et géographiques restent régulièrement caractérisables. Dans l’attente de données nucléaires indépendantes plus nombreuses, voire génomiques, je conserve provisoirement l’essentiel des sous-espèces que mes observations de terrain permettent encore de distinguer.
Au fil des décennies, j’ai approfondi l’examen de la morphologie des ailes et de l’extension des marques alaires des mâles, tout en étudiant la fréquence très variable des femelles homéochromes selon les populations européennes à partir de mes observations et de la documentation disponible. Ces observations m’ont conduit à réexaminer plusieurs distinctions taxonomiques pas encore admises par la Communauté odonatologique, notamment au sein du complexe splendens (Deliry [2026a/e]).
J’envisage ainsi de reconnaître Calopteryx ancilla au rang d’espèce, en m’appuyant sur l’examen combiné des caractères des mâles et de la représentativité des femelles homéochromes (Deliry [2026a]). Mes recherches méditerranéennes m’ont également amené à proposer en 2026 (Deliry [2026e]) la variété haemorrhoidaloides chez Calopteryx ancilla, ainsi qu’à préparer la description de deux autres taxons sous les épithètes helohis et nurag, projets engagés respectivement en 2004 et 2008 et dont les conclusions restent à finaliser (Deliry [2026i/j]).
Parallèlement à ces recherches de terrain, mes publications et mes interventions auprès des réseaux naturalistes ont régulièrement souligné les limites des déterminations fondées sur quelques caractères isolés, particulièrement lorsqu’il s’agit de reconnaître les sous-espèces françaises. Plusieurs contributions récentes publiées dans les Histoires Naturelles prolongent cette réflexion sur la variabilité, la nomenclature et les relations entre les taxons du genre (Deliry [2024], [2026c, d, f]).
C’est donc fort de plus de quarante années d’observations, de comparaisons morphologiques et de réflexions taxonomiques que j’aborde aujourd’hui les phylogénies moléculaires des Calopteryx. Loin de découvrir un groupe qui me serait étranger, je confronte les résultats des analyses COI et ITS1 à une expérience de terrain qui m’a depuis longtemps sensibilisé à la complexité de ses populations et de ses frontières spécifiques. Ces nouvelles données génétiques pourraient apporter un éclairage inattendu sur des questions que je poursuis depuis plusieurs décennies, sans avoir encore épuisé le sujet ni achevé l’ensemble de mes travaux.
Les Calopteryx : près de trois siècles de questions, et encore de nouvelles énigmes
Distinguer les différentes espèces de Caloptéryx n’a jamais été aussi simple qu’il pourrait y paraître. Depuis près de trois siècles, les naturalistes s’efforcent de reconnaître, de décrire et de classer ces demoiselles aux ailes souvent vivement colorées, dont les multiples formes géographiques ne se laissent pas toujours enfermer dans des catégories taxonomiques parfaitement définies.
Les différences morphologiques, notamment celles qui concernent la coloration des ailes des mâles, ont longtemps constitué les principaux critères de distinction. Elles ont permis de reconnaître progressivement plusieurs espèces et de préciser leurs caractères diagnostiques, sans pour autant faire disparaître toutes les interrogations sur leurs relations de parenté. S’y ajoute l’examen du ventre thoracique des femelles que j’ai révélé être souvent plus fiable pour repérer espèces ou sous-espèces en France (voir Wendler & Nuß 1997).
Avec l’avènement des analyses moléculaires, on aurait pu espérer résoudre définitivement ces difficultés. Les phylogénies montrent au contraire que certaines frontières restent difficiles à interpréter. Mes analyses du COI et d’ITS1 en fournissent un exemple particulièrement net, que l’étude récente de Dumont & al. (2025) permet de replacer dans un contexte plus large.
Une importante étude récente de Dumont & al. (2025) a précisément tenté de confronter, à l’échelle du groupe Calopteryx splendens, la morphologie, la biogéographie et les données moléculaires obtenues avec le COI mitochondrial et une région ribosomique nucléaire comprenant ITS1, 5.8S et ITS2. Les auteurs aboutissent à une image très jeune et largement polytomique du complexe splendens et constatent eux-mêmes plusieurs discordances entre les marqueurs. Ils soulignent en particulier que presque toutes les sous-espèces traditionnellement reconnues de Calopteryx splendens sont mal soutenues par leurs données moléculaires. Leur analyse nucléaire est plus étendue que la mienne, limitée ici à ITS1, mais ITS1, 5.8S et ITS2 appartiennent à une même unité ribosomique répétée : ils ne représentent donc pas plusieurs loci nucléaires indépendants. Ce point est important, car une confirmation obtenue à partir de plusieurs régions nucléaires indépendantes du génome apporterait un test beaucoup plus robuste des relations entre les taxons. Leur analyse constitue néanmoins pour moi un point de comparaison essentiel. Elle repose en partie sur des séquences publiques que j’ai moi-même intégrées à mes reconstructions, mais selon un échantillonnage, un traitement phylogénétique et une problématique différents. Surtout, les auteurs reconnaissent que leurs arbres peuvent contenir des hybrides non identifiés, ce qui place explicitement l’hybridation parmi les phénomènes susceptibles de brouiller la lecture strictement taxonomique des phylogénies. Mon propos sera cependant quelque peu différent. Là où Dumont & al. (2025) cherchent principalement à réviser la taxonomie et la biogéographie du groupe splendens, je m’intéresse ici à la discordance elle-même : pourquoi certaines lignées mitochondriales ne suivent-elles pas les frontières que suggèrent la morphologie ou le signal nucléaire ? Cette question devient centrale dans l’hypothèse des «Ulriques mitochondriales».
Après près de trois siècles de recherches, et malgré des révisions aussi récentes et approfondies que celle de Dumont & al. (2025), les Calopteryx semblent donc capables de réserver encore quelques surprises. Certaines d’entre elles pourraient concerner non seulement les limites entre espèces, mais aussi l’histoire ancienne des lignées maternelles qui les composent aujourd’hui.
C’est précisément cette possibilité que je souhaite explorer à travers l’hypothèse des «Ulriques mitochondriales».
Matériel et méthodes
Les analyses présentées ici reposent sur deux jeux de séquences distincts : un ensemble mitochondrial correspondant au gène COI et un ensemble nucléaire correspondant à ITS1. Les deux marqueurs ont été volontairement analysés séparément afin de préserver la possibilité d’une discordance biologique entre les deux compartiments génétiques, plutôt que de la masquer par une concaténation. Le COI, mitochondrial, retrace une histoire essentiellement maternelle, tandis qu’ITS1 fournit un signal nucléaire indépendant (Deliry [2026k]).
Cette démarche permet également une comparaison directe avec l’étude récente de Dumont & al. (2025), qui confronte elle aussi données mitochondriales et nucléaires chez Calopteryx splendens et les taxons apparentés. Leur analyse repose sur le COI et sur une région ribosomique nucléaire plus étendue que celle que j’utilise ici, comprenant ITS1, 5.8S et ITS2. Il ne s’agit cependant pas de trois marqueurs nucléaires indépendants, mais de différentes composantes d’une même unité ribosomique. Leur protocole phylogénétique diffère également du mien : les alignements ont été réalisés avec MAFFT, le modèle d’évolution sélectionné avec jModelTest et les arbres reconstruits dans un cadre bayésien avec MrBayes.
Le jeu COI utilisé ici comprend environ 109 séquences, tandis que l’analyse ITS1 porte sur environ 69 séquences. Les taxons retenus couvrent un ensemble plus large du genre Calopteryx que celui au cœur de l’étude de Dumont et al., avec notamment Calopteryx virgo, C. haemorrhoidalis, C. cornelia, C. japonica et plusieurs taxons du complexe splendens–xanthostoma. Des séquences nord-américaines de Calopteryx aequabilis et C. amata ont été conservées comme éléments de comparaison, tandis qu’Atrocalopteryx atrata a été utilisé comme groupe externe principal.
Une partie des données provient de GenBank et recoupe donc vraisemblablement certaines séquences utilisées par Dumont et collaborateurs, qui indiquent eux-mêmes avoir intégré à leur analyse des séquences publiques en complément de leurs propres données. Il ne s’agit cependant pas de deux jeux de données identiques : l’échantillonnage, l’étendue taxonomique et les méthodes de reconstruction diffèrent.
La comparaison entre les deux études doit donc porter avant tout sur les grands motifs phylogénétiques : cohérence ou non de certains taxons, degré de résolution du complexe splendens, discordances entre marqueurs et position des lignées atypiques, plutôt que sur une comparaison directe des valeurs de support.
L’ITS1 : une cohésion spécifique nette pour plusieurs taxons, mais un complexe splendens mal résolu
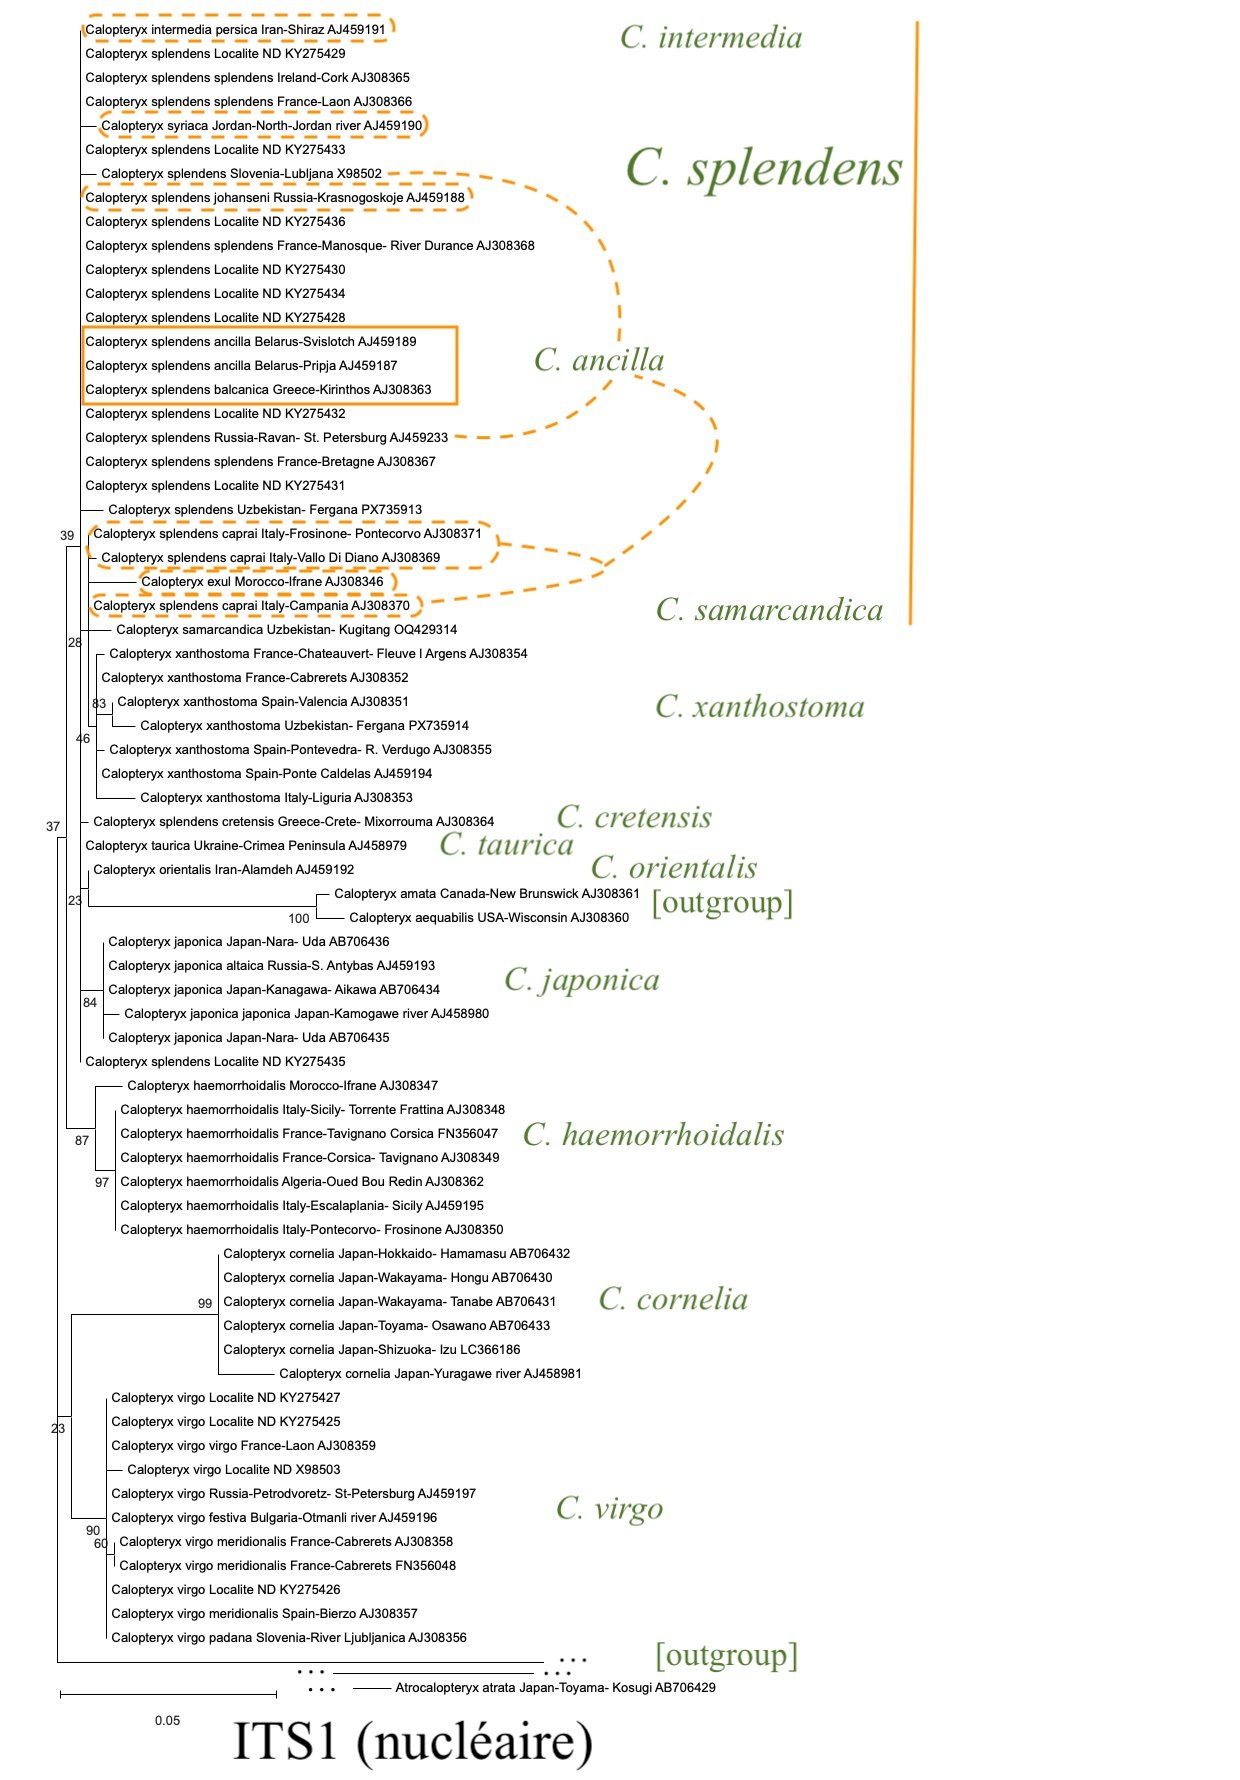
L’arbre obtenu avec ITS1 met en évidence plusieurs ensembles spécifiques relativement bien individualisés, sans pour autant résoudre l’ensemble des relations internes au genre. Certains taxons présentent une cohésion remarquable, tandis que d’autres, en particulier au sein du complexe splendens, demeurent très faiblement structurés. ITS1 fournit ainsi une première image nucléaire utile, mais qui doit être interprétée avec prudence : il s’agit d’un seul marqueur appartenant à la région ribosomique nucléaire, et non d’un reflet complet du génome nucléaire.
Cette cohésion ne doit toutefois pas être assimilée à une résolution parfaite. Chez C. virgo, les formes virgo, festiva, meridionalis et padana ne sont pas chacune profondément séparées ; de même, la structure interne de C. japonica reste peu résolue. L’ITS1 semble donc mieux restituer certains ensembles spécifiques que leurs subdivisions infraspécifiques. Surtout, le complexe splendens contraste fortement avec ces groupes bien individualisés. C. splendens splendens, ancilla, balcanica, johanseni, caprai, cretensis, intermedia persica, syriaca, exul, samarcandica, xanthostoma, taurica et orientalis occupent une vaste zone de l’arbre où de nombreux nœuds sont faiblement soutenus. La topologie en « peigne » doit donc être lue comme une faible résolution des divergences internes plutôt que comme une succession solidement démontrée de séparations.
Le cas de C. xanthostoma est particulièrement instructif. Certaines de ses séquences se rapprochent entre elles, et le regroupement Valencia–Fergana atteint un bootstrap de 83, mais l’ensemble ne constitue pas un clade nettement individualisé. Là encore, l’ITS1 fournit un signal partiel plutôt qu’une frontière spécifique incontestable. De la même manière, C. exul apparaît proche de certaines formes du complexe splendens, mais avec un soutien insuffisant pour transformer cette proximité en conclusion taxonomique.
Ce résultat rejoint dans ses grandes lignes celui de Dumont & al. (2025). Leur analyse de la région ribosomique nucléaire ITS1–5.8S–ITS2 met elle aussi en évidence une faible résolution interne du groupe splendens et un soutien limité pour de nombreuses subdivisions traditionnellement reconnues. Leur jeu nucléaire est plus étendu que le mien, mais il appartient au même ensemble ribosomique et ne représente pas plusieurs loci nucléaires indépendants. La convergence entre les deux analyses est donc intéressante, sans constituer une réplication indépendante au sens strict. Dumont & al. reconnaissent eux-mêmes que plusieurs taxons du groupe splendens se situent dans une zone phylogénétique très peu résolue, ce qui est compatible avec une histoire récente, réticulée ou simplement insuffisamment informative avec ces marqueurs.
L’enseignement principal de l’ITS1 est donc double : plusieurs espèces présentent une cohésion nucléaire bien marquée, tandis que le complexe splendens demeure difficile à résoudre. ITS1 ne fournit pas pour autant le «vrai arbre» définitif des Calopteryx : il s’agit d’un seul marqueur nucléaire ribosomique, dont le signal doit être confronté à d’autres données. Il constitue néanmoins une première référence nucléaire permettant d’examiner la cohérence de plusieurs ensembles taxonomiques.
Le COI : lorsque les frontières taxonomiques deviennent beaucoup moins nettes
Le passage au marqueur mitochondrial COI modifie sensiblement l’image obtenue avec ITS1. Certains ensembles qui étaient bien individualisés dans l’arbre nucléaire restent parfaitement reconnaissables, tandis que d’autres se fragmentent ou se retrouvent mêlés à des taxons différents. Cette différence est importante : le COI n’est pas simplement un marqueur peu résolu chez les Calopteryx. Il peut produire des clades très robustes pour certains taxons, tout en révélant ailleurs des discordances beaucoup plus marquées avec les limites taxonomiques reconnues.
Calopteryx cornelia fournit l’exemple le plus clair de concordance entre les deux marqueurs. Les cinq individus japonais présents dans l’analyse COI forment un groupe soutenu par un bootstrap de 100, en accord remarquable avec le clade ITS1, lui-même soutenu à 99. Pour ce taxon, les histoires mitochondriale et nucléaire apparaissent donc largement concordantes.
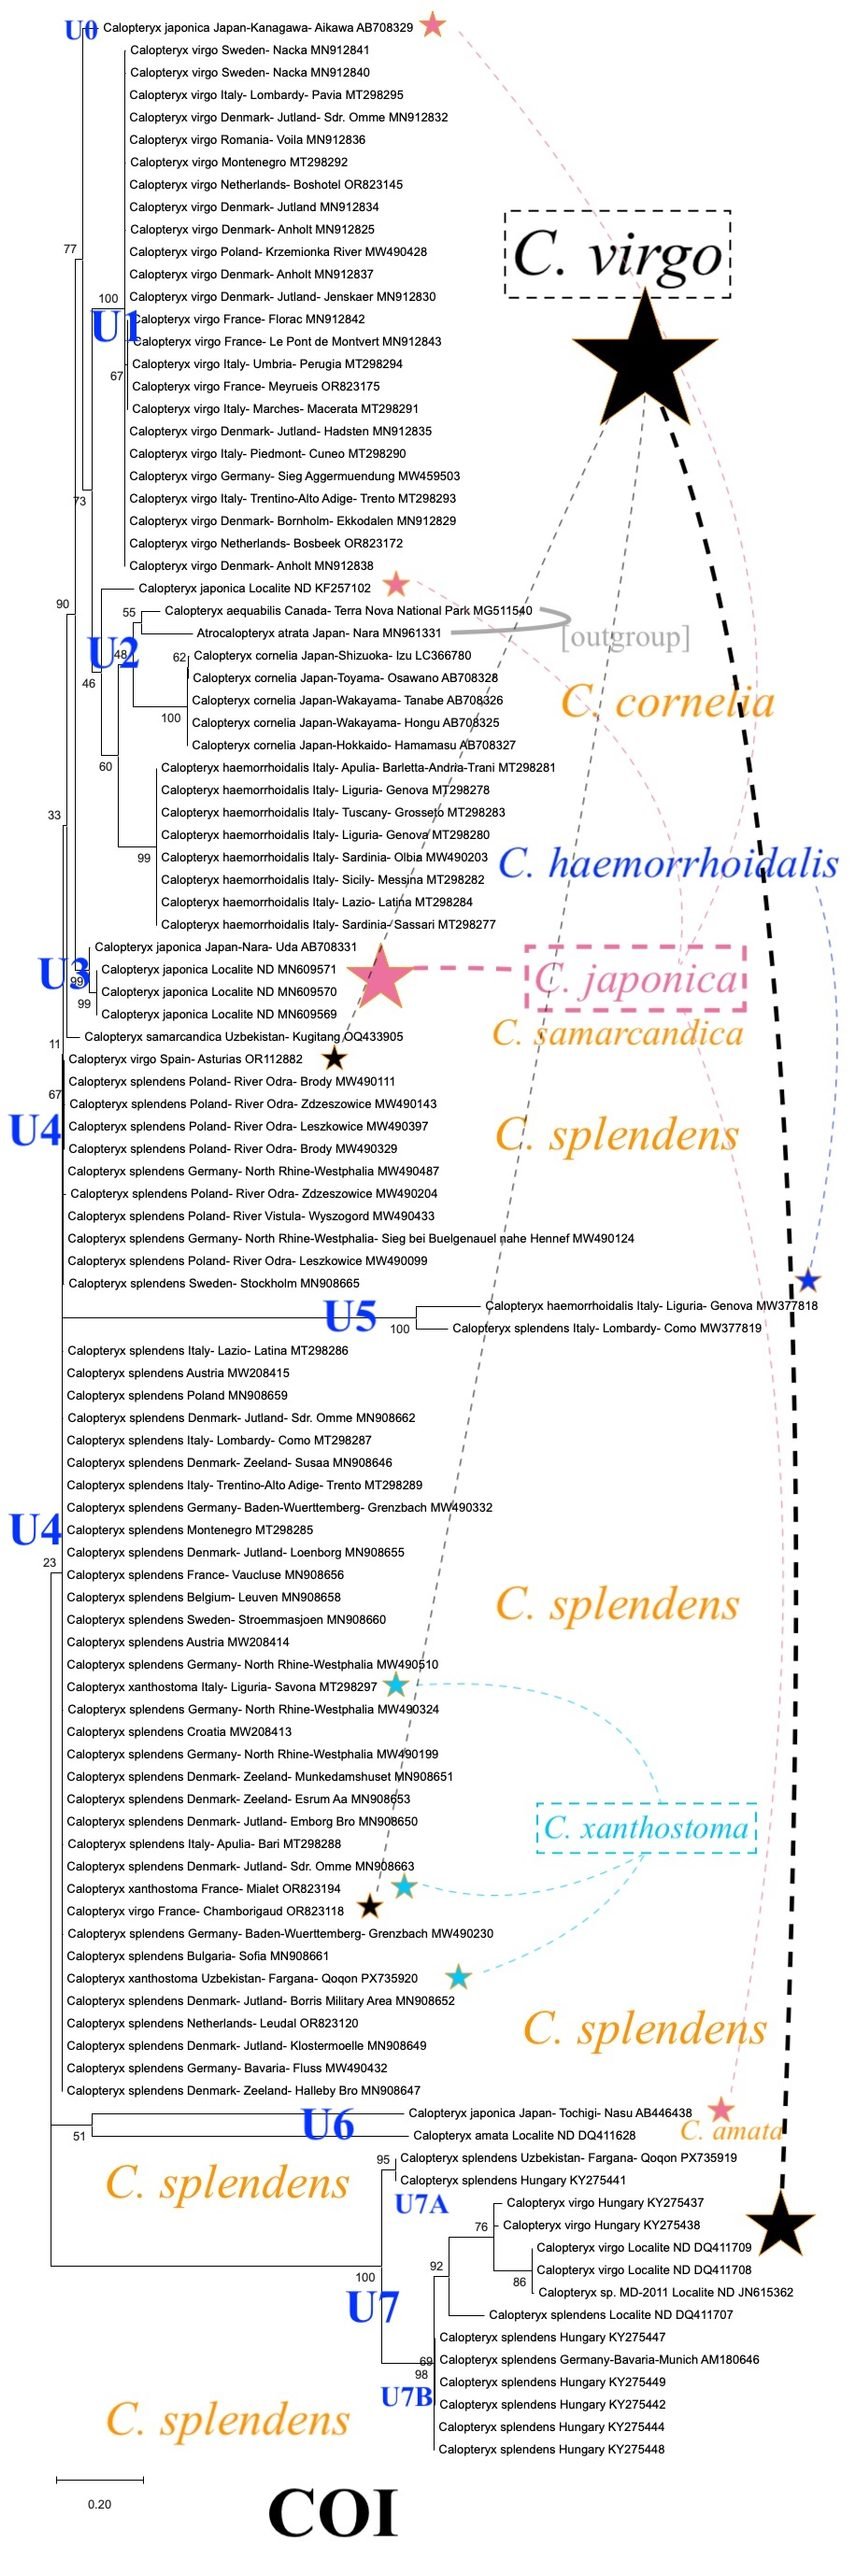
La situation est presque aussi nette chez Calopteryx haemorrhoidalis. Un ensemble italien comprenant notamment des individus de Ligurie, Toscane, Latium, Sardaigne, Sicile et des Pouilles forme un noyau mitochondrial extrêmement robuste, avec des soutiens voisins de 99 à 100. Mais une séquence attribuée à C. haemorrhoidalis de Gênes se retrouve très loin de ce groupe, associée à une séquence de C. splendens de Côme. Cette anomalie est d’autant plus remarquable que les deux séquences se situent au bout de branches exceptionnellement longues. Avant toute interprétation biologique, ce cas doit donc être vérifié : erreur d’identification, problème d’annotation, séquence atypique ou autre artefact restent possibles.
Chez Calopteryx virgo, la discordance devient plus nette. Un vaste ensemble mitochondrial européen est très fortement soutenu, mais quelques individus attribués à l’espèce apparaissent ailleurs dans l’arbre, notamment en Espagne, en France et en Hongrie. Il existe donc un noyau mitochondrial de virgo très cohérent, sans pour autant que toutes les séquences portant ce nom appartiennent au même clade. Cela contraste avec l’ITS1, qui regroupait beaucoup plus nettement l’ensemble des formes étudiées de l’espèce.
Le cas de Calopteryx japonica est encore plus spectaculaire. Alors que les cinq individus étudiés en ITS1 formaient un groupe relativement cohérent, les séquences COI attribuées à japonica se retrouvent dispersées dans plusieurs régions éloignées de l’arbre. Certaines sont associées à des ensembles très différents, et l’une d’elles se situe même à proximité de C. amata. Si les identifications et les séquences sont correctes, il s’agit de l’une des discordances les plus fortes observées dans l’ensemble de l’analyse.
Enfin, le complexe splendens–xanthostoma présente une situation différente. Ici, la difficulté n’est pas seulement une opposition simple entre un arbre nucléaire cohérent et un arbre mitochondrial discordant : les deux marqueurs montrent déjà une faible résolution, mais le COI accentue encore l’imbrication. Les séquences de splendens se répartissent entre plusieurs ensembles, tandis que celles de xanthostoma ne constituent pas un clade mitochondrial indépendant et apparaissent au sein de différentes lignées de splendens. Mon analyse rejoint donc qualitativement le constat de Dumont & al. (2025) : la séparation entre splendens et xanthostoma reste incomplète dans les données moléculaires, même si le signal nucléaire paraît un peu plus structuré que le COI.
Pris ensemble, ces résultats montrent que le COI ne produit pas un simple « désordre » uniforme. Il restitue très bien certains taxons, comme C. cornelia et une grande partie de C. haemorrhoidalis, mais révèle ailleurs des lignées mitochondriales qui ne coïncident pas avec les ensembles suggérés par ITS1 ou par la taxonomie. C’est précisément cette hétérogénéité qui rend la discordance intéressante : elle demande à être expliquée plutôt qu’attribuée d’emblée à une faiblesse générale du marqueur.
Une discordance n’est pas encore une explication
Constater que deux marqueurs racontent des histoires différentes est une chose ; comprendre pourquoi en est une autre.
Plusieurs mécanismes peuvent produire ce type de discordance. Des lignées ancestrales peuvent avoir été conservées différemment après la séparation de populations : c’est le tri incomplet des lignées. Des populations peuvent aussi avoir subi des expansions, des contractions ou des isolements géographiques successifs. Des hybridations anciennes peuvent enfin avoir permis à des mitochondries de passer d’une population ou d’une espèce à une autre, tandis que le reste du génome suivait une histoire différente. À cela s’ajoutent des explications plus techniques : erreurs d’identification, annotations incorrectes dans les bases de données, séquences atypiques ou pseudogènes mitochondriaux peuvent produire certaines positions aberrantes. Les longues branches observées chez quelques individus imposeraient donc des vérifications particulières.
C’est seulement après avoir gardé ouvertes ces différentes possibilités que l’hypothèse des « Ulriques mitochondriales » peut être formulée sérieusement.
Une prédiction essentielle : les discordances ne devraient pas être aléatoires
Si l’hypothèse d’introgressions mitochondriales anciennes et géographiquement structurées est correcte, les discordances observées dans l’arbre COI ne devraient pas se répartir au hasard. Elles devraient apparaître préférentiellement entre populations ou espèces ayant pu entrer en contact, aujourd’hui ou dans le passé, et conserver ainsi une certaine organisation géographique. À l’inverse, des populations demeurées longtemps isolées pourraient présenter une meilleure concordance entre morphologie, ITS1 et COI. Le « désordre » apparent de l’arbre mitochondrial pourrait donc dissimuler une structure biogéographique, héritée de refuges glaciaires, de contacts secondaires, puis d’expansions ou de recolonisations successives. C’est à cette condition que l’hypothèse devient véritablement testable : il faudra examiner les discordances population par population et région par région, rechercher si elles correspondent à des zones plausibles de contact entre lignées et, autant que possible, les confronter à plusieurs marqueurs nucléaires indépendants. J’ai commencé ce travail en répartissant les séquences COI entre les ensembles repérés sur l’arbre et en confrontant leur composition aux noms des taxons (annexe 1). Le tableau met en évidence des ensembles propres à un seul taxon, des taxons répartis entre plusieurs ensembles et des regroupements réunissant plusieurs noms spécifiques. Ces derniers signalent des situations à examiner en priorité ; ils ne démontrent pas, à eux seuls, une introgression. Ce n’est qu’alors qu’une lignée mitochondriale atypique pourra être envisagée autrement que comme une simple anomalie de l’arbre et prendre, dans le cadre de cette étude, le statut hypothétique d’ »Ulrique mitochondriale ».
Pourquoi « Ulrique » ?

Le choix du nom « Ulrique » plonge directement dans l’histoire des Calopteryx. En 1746, bien avant la généralisation de la nomenclature binominale zoologique, Linné introduit dans sa Fauna svecica deux noms « vulgo » pour des demoiselles : Lovisa et Ulrica, en hommage à Lovisa Ulrika de Prusse, alors princesse héritière de Suède et future reine consort (Hämäläinen & Orr 2017). Le nom Ulrica est appliqué à sa Libellula n° 758, correspondant à une femelle de ce que nous reconnaissons aujourd’hui comme Calopteryx virgo. En 1758, dans la dixième édition du Systema Naturae, Linné rassemble plusieurs formes sous le nom de Libellula virgo Linnaeus, 1758, dans une acception plus large que celle de notre Calopteryx virgo actuel puisqu’elle englobe également des formes relevant de Calopteryx splendens. En 1762, Étienne-Louis Geoffroy reprend directement Ulrica en français sous la forme « L’Ulrique », pour une femelle qu’il rapporte explicitement à Libellula virgo et au n° 758 de la Fauna svecica.
J’emploie ici «Ulrique mitochondriale» comme nom de travail pour un ensemble de séquences apparentées dans l’arbre mitochondrial, sans en faire un taxon ni un morphotype femelle. Certaines de ces lignées pourraient avoir franchi les frontières entre populations ou espèces aujourd’hui distinctes ; c’est cette possibilité d’introgression ancienne, et non leur seule présence dans l’arbre, que je cherche à éprouver.
Le clin d’œil historique est approprié : les naturalistes du XVIIIe siècle réunissaient encore sous une même conception des formes que la taxonomie séparera ensuite. Le terme fait également écho, par analogie, à l’«Ève mitochondriale» de la génétique humaine, concept popularisé à la suite des travaux de Rebecca L. Cann, Mark Stoneking et Allan C. Wilson (1987), qui ont retracé par l’ADN mitochondrial l’ascendance maternelle commune des lignées humaines actuelles. Mon usage s’en distingue toutefois : une « Ulrique mitochondriale » ne désigne pas un ancêtre fondateur unique, mais une lignée maternelle particulière dont l’histoire pourrait ne pas coïncider avec les frontières spécifiques actuelles.
Le terme possède ainsi une double valeur, historique et heuristique. Il invite à poser au COI une question différente de la seule identification spécifique : quelle histoire maternelle et biogéographique cette mitochondrie conserve-t-elle ?
L’hybridation chez les Calopteryx : un mécanisme déjà documenté
Une fois l’hypothèse des «Ulriques mitochondriales» posée, reste à savoir si le mécanisme qu’elle suppose est biologiquement plausible chez les Calopteryx. Sur ce point, l’hybridation entre espèces proches est déjà documentée dans la nature. Tynkkynen & al. (2008) ont ainsi identifié génétiquement sept hybrides F1 entre Calopteryx splendens et Calopteryx virgo. L’analyse de leur ADN mitochondrial montrait que les croisements avaient eu lieu dans les deux directions : cinq hybrides provenaient d’un mâle C. splendens et d’une femelle Calopteryx virgo, tandis que deux résultaient du croisement inverse. Les auteurs mettaient également en évidence une isolation pré-copulatoire imparfaite. Quelques années plus tard, Keränen & al. (2013), sur plus de 2000 individus génotypés, ont retrouvé des hybrides et même un individu issu d’un rétrocroisement ; ils ont en outre observé 17 accouplements hétérospécifiques parmi 272 accouplements suivis sur le terrain.
Ces observations ne démontrent évidemment pas que les discordances COI–ITS1 que j’observe résultent d’introgressions anciennes. Elles montrent en revanche que plusieurs étapes nécessaires au scénario sont possibles chez ces espèces : hybridation, transmission d’une mitochondrie d’origine hétérospécifique et rétrocroisement. L’hypothèse des «Ulriques mitochondriales» repose donc sur un mécanisme déjà observé, même si son rôle historique dans les discordances actuelles reste à démontrer.
Deux histoires qu’il reste à départager
Les arbres COI et ITS1 ne permettent pas à eux seuls de reconstituer définitivement l’histoire évolutive des Calopteryx paléarctiques. Ils montrent cependant quelque chose de suffisamment net pour mériter d’être poursuivi : l’histoire mitochondriale et le signal nucléaire ne coïncident pas toujours. La concordance est forte chez certains taxons, notamment Calopteryx cornelia, tandis que des discordances beaucoup plus marquées apparaissent chez C. virgo et surtout C. japonica. Le complexe splendens–xanthostoma, quant à lui, reste difficile à résoudre avec les deux marqueurs, mais selon des modalités différentes.
Je ne considère pas pour autant ces discordances comme la démonstration d’anciennes introgressions mitochondriales. Le tri incomplet des lignées, l’histoire démographique des populations, d’éventuels problèmes de séquences ou d’identification et, chez les insectes, l’action possible d’endosymbiotes restent des explications concurrentes. L’hypothèse des «Ulriques mitochondriales» n’a d’intérêt que si elle produit des prédictions vérifiables : les discordances devraient notamment présenter une organisation géographique compatible avec d’anciennes zones de contact et être confrontées à plusieurs loci nucléaires indépendants.
C’est donc moins un nouvel arbre définitif que je cherche ici à proposer qu’une manière différente de lire les arbres existants. Une séquence mitochondriale inattendue n’est peut-être pas seulement une anomalie taxonomique : elle peut aussi conserver la trace d’une histoire maternelle plus ancienne que les frontières spécifiques actuelles. C’est précisément ce que désigne, à titre d’hypothèse de travail, le terme d’« Ulrique mitochondriale ».
La suite devra donc consister à confronter systématiquement taxonomie, géographie, COI et plusieurs marqueurs nucléaires indépendants, en portant une attention particulière aux zones de contact anciennes ou actuelles. Si cette approche confirme que certaines lignées mitochondriales ont franchi des limites spécifiques, l’hypothèse d’une histoire introgressive pour certaines « Ulriques » gagnera en consistance. Si elle les réfute, le terme aura au moins servi à formuler une hypothèse suffisamment précise pour être mise à l’épreuve.
Perspectives : deux recherches à poursuivre
Deux prolongements me paraissent nécessaires. Le premier sera de rechercher dans les banques internationales, notamment GenBank, des marqueurs nucléaires indépendants d’ITS1–5.8S–ITS2, afin de confronter leurs résultats à ceux du COI et d’examiner plus rigoureusement les relations au sein du complexe Calopteryx splendens, en regard des morphotypes constatés sur le terrain. Le second consistera à rassembler mes travaux, déjà largement rédigés, sur les caractères morphotypiques des Calopteryx : caractères alaires, coloration thoracique des femelles et fréquence des morphotypes selon les populations. Il s’agira de les confronter aux résultats de l’article de Dumont & al. (2025). Deux articles complémentaires sont donc envisagés : l’un approfondira l’histoire génétique des lignées, l’autre la diversité morphologique et géographique des populations. Leur confrontation pourra ensuite éclairer les relations entre morphologie, taxonomie et histoire évolutive.
Références
Cann R.L., Stoneking M. & Wilson A.C. 1987 – Mitochondrial DNA and human evolution. – Nature, 325 : 31–36.
Deliry C. 1993 – Variabilité des populations de Calopteryx en Savoie et en Isère (France). – In : Maibach A. & Meier C. (eds) – Bericht Champittet (6. Tagung der Schweizerischen Libellenkundler). – CSCF, Nouvelles, 6 : 21.
[Deliry C. 2023] – Les Caloptéryx de Suède par Linné (1746). – In : : Odonates du Monde (Histoires Naturelles) (2004-[2023]) – Version 20318 du 05.09.2023. – odonates.net
[Deliry C. 2024] – Le Calopteryx de Saint-Jean-d’Angély. – Histoires Naturelles, Blog, 12 juin 2024. – ONLINE
[Deliry C. 2026a] – Calopteryx ancilla – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 85997 du 10.08.2026. – odonates.net
[Deliry C. 2026i] – Calopteryx haemorrhoidalis – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 79468 du 28.05.2026. – odonates.net
[Deliry C. 2026j] – Calopteryx helohis – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 79645 du 28.05.2026. – odonates.net
[Deliry C. 2026b] – Calopteryx splendens gr. – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 86400 du 16.08.2026. – odonates.net
[Deliry C. 2026c] – Discussion sur les sous-espèces de Calopteryx splendens et proposition de révision systématique – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 86401 du 16.08.2026. – odonates.net
[Deliry C. 2026d] – Histoire Naturelle des Caloptéryx – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 72444 du 31.12.2025. – odonates.net
[Deliry C. 2026f] – Lecture commentée de l’article de Dumont (1972) sur Calopteryx xanthostoma, selon de nouveaux regards – Ⓑlog Histoires Naturelles, 10 août 2026. – ONLINE
[Deliry C. 2026k] – Lire les arbres phylogénétiques pour mieux comprendre la Biodiversité. – Ⓑlog Histoires Naturelles, 19 septembre 2026. – ONLINE
[Deliry C. 2026e] – Nouveautés et mise en perspectives des Calopteryx du groupe splendens du sud de la Péninsule italienne. – Histoires Naturelles, Ⓑlog, 9 février 2025. – ONLINE
[Deliry C. 2026g] – Projet Calopteryx en Rhône-Alpes – In : Odonates en France (Histoires Naturelles – wOw) (2004-[2026]) – Version 23097 du 15.10.2023. – odonates.net
Dumont H.J. & al. 2025 – Calopteryx splendens and relatives : taxonomy, biogeography, and phylogeny (Odonata : Calopterygidae). – Odonatologica, 54 (1/2), (1er juin 2025) : 1-52.
Geoffroy E.L. 1762 – Histoire abrégée des insectes qui se trouvent aux environs de Paris. – Durand, Paris.- ONLINE
Hämäläinen M. & Orr 2017 – From Princess Lovisa Ulrika to the Gyalsey, Dragon Prince of Bhutan. Royalty in dragonfly names from 1746 to 2017. – Agrion, 21 (2) : 61-71.
Keränen I. & al. 2013 – High maternal species density mediates unidirectional heterospecific matings in Calopteryx damselflies. – Biological Journal of the Linnean Society, 108 (3) : 534–545.
Linnaeus C. 1746 – Fauna Svecica. – Stockholmiae [Libellula] : 227-232. – ONLINE
Linnaeus C. 1758 – Systema naturae per regna tria naturae. 10ᵉ édition, volume 1. – Holmiae. – [Libellula] PDF
Maibach A. 1985 – Révision systématique du genre Calopteryx Leach (Odonata, Zygoptera) pour l’Europe occidentale. I. Analyses biochimiques. – Mitteilungen der Schweizerischen Entomologischen Gesellschaft, 1985.
Maibach A. 1986 – Revision systematique du genre Calopteryx Leach (Odonata, Zygoptera) pour l’Europe occidentale. II. Analyses morphologiques et synthese. – Mitteilungen der Schweizerischen Entomologischen Gesellschaft, 1986.
Maibach A. 1987 – Révision systématique du genre Calopteryx Leach pour l’Europe occidentale (Zygoptera : Calopterygidae). 3. Révision systématique, étude bibliographique, désignation des types et clé de détermination. – Odonatologica, 16 (2) : 145-174.Tynkkynen K. & al. 2008 – Hybridization in Calopteryx damselflies: the role of males. – Animal Behaviour, 75 (4) : 1431–1439.
Wendler A. & Nüß J.H. 1997 – Libellules. Guide d’identification des libellules de France, d’Europe septentrionale et centrale. – Société française d’Odonatologie. – ONLINE
Annexe 1 – Arbre COI (mitochondrial)
Lecture de l’arbre COI – Les repères U0 à U7B permettent de localiser sur l’arbre MEGA les lignées mitochondriales individualisées, appelées ici « Ulriques », ainsi que les séquences isolées et les ensembles composites ou insuffisamment résolus. Leur portée dépend du soutien des nœuds, de la qualité des accessions et de la géographie des spécimens. Les associations atypiques à longues branches demandent une vérification indépendante avant toute interprétation évolutive. Leur numérotation sert au repérage des séquences et ne correspond pas à neuf événements d’introgression démontrés.
- U0 : isolée – Japon : une séquence isolée de Calopteryx japonica (Aikawa), extérieure au noyau mitochondrial principal de l’espèce.
- Ulrique 1 – Europe : vaste lignée mitochondriale de Calopteryx virgo, largement concordante avec le regroupement nucléaire ITS1.
- U2 : composite – Il s’agit d’une région composite de l’arbre, et non d’une lignée unique solidement établie. Elle contient notamment les groupes distincts de Calopteryx cornelia et de C. haemorrhoidalis, ainsi qu’une séquence attribuée à C. japonica. Leur présence dans cette même région ne constitue pas un indice suffisant d’introgression.
- Ulrique 3 – Japon : noyau mitochondrial fortement soutenu de Calopteryx japonica (BS 99).
- U4 : à étudier – Europe et Asie occidentale : vaste ensemble mitochondrial principalement constitué de Calopteryx splendens, dans lequel sont imbriquées plusieurs séquences de C. xanthostoma ainsi que deux séquences attribuées à C. virgo provenant des Asturies (Espagne) et de Chamborigaud (France). Les faibles soutiens des nœuds profonds imposent de considérer cet ensemble comme une zone de discordance plutôt que comme une lignée unique fortement établie.
- Ulrique 5 – Italie septentrionale : association fortement soutenue (BS 100) entre une séquence attribuée à Calopteryx haemorrhoidalis de Gênes et une séquence de C. splendens de Côme. Ce regroupement constitue un candidat particulièrement intéressant à une discordance interspécifique, mais les longueurs de branches exceptionnelles imposent de vérifier les séquences et les identifications avant toute interprétation en termes d’introgression.
- U6 : incertitudes – Japon / Amérique du Nord : rapprochement faiblement soutenu (BS 51) entre une séquence de Calopteryx japonica et C. amata. Sa portée biogéographique est difficile à interpréter et ce regroupement ne peut pas être retenu comme indice solide d’introgression
- U7A : ensemble mixte et à préciser – Ouzbékistan et Hongrie : ensemble mêlant des séquences attribuées à Calopteryx splendens et à C. virgo, avec plusieurs sous-groupes bien soutenus. Il constitue une discordance interspécifique à examiner en priorité.
- Ulrique 7B – Hongrie et Allemagne : lignée mitochondriale de Calopteryx splendens, fortement soutenue, distincte de l’ensemble mixte U7A.
Le tableau fait apparaître deux types de discordance descriptive : plusieurs ensembles mitochondriaux peuvent être attribués à un même taxon, tandis qu’un même ensemble peut contenir des séquences identifiées sous des noms spécifiques différents. Les cas concernant Calopteryx japonica, C. virgo et le complexe splendens–xanthostoma méritent une confrontation accession par accession avec la géographie, les soutiens de l’arbre et l’ITS1. Les ensembles Ulrique 2 et Ulrique 4, qui correspondent à de vastes régions de l’arbre dont les relations internes sont inégalement soutenues, doivent être considérés comme des repères descriptifs plutôt que comme des lignées mitochondriales uniques et solidement établies Le tableau ne permet pas de déduire directement le nombre d’événements d’introgression, ni même d’affirmer que chacun de ses regroupements interspécifiques résulte d’une hybridation. Parmi les quatre Ulriques maintenues, trois sont monotypiques et une seule, l’Ulrique 5, réunit des séquences attribuées à deux espèces différentes. Cette dernière apparaît ainsi comme le cas le plus directement compatible avec une possible introgression, sous réserve de vérifications complémentaires.
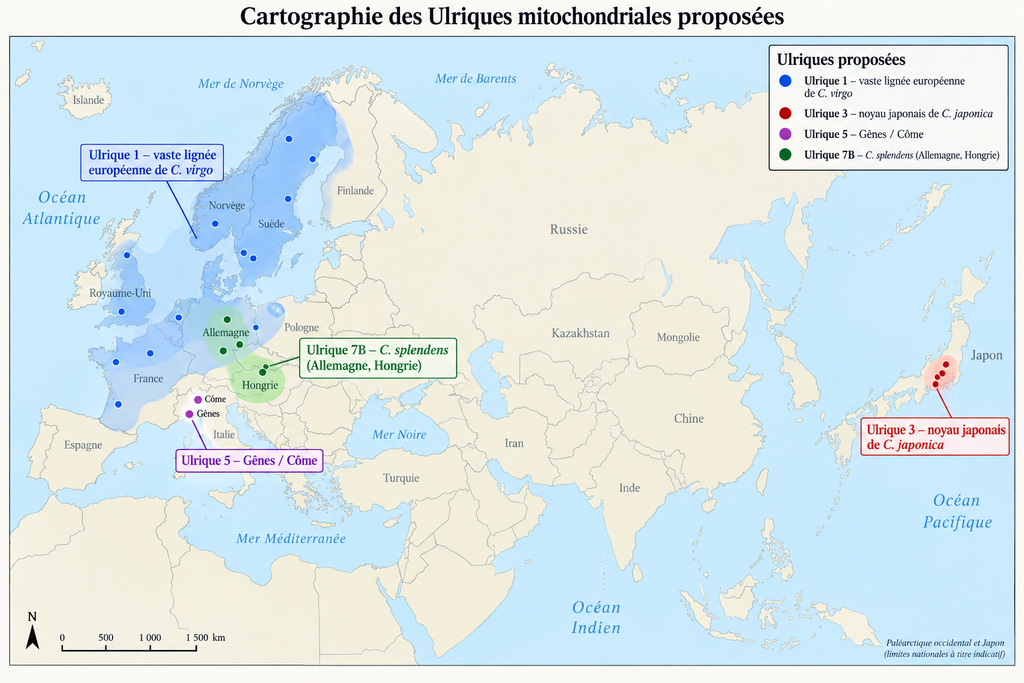
Parmi les quatre Ulriques proposées, les Ulriques 1 et 3 correspondent à des ensembles spécifiques également individualisés par l’ITS1. L’Ulrique 7B, constituée de Calopteryx splendens, ne possède pas de correspondant nucléaire aussi nettement résolu. Seule l’Ulrique 5 réunit deux espèces que l’ITS1 tend à distinguer, faisant apparaître une discordance interspécifique dont l’origine reste à établir.
| Ulriques mitochondriale Calopteryx [N] | U0 [1] | U1 [1] | U2 [3] | U3 [1] | U4 [3] | U5 [2] | U6 [2] | U7A [1] | U7B [2] |
|---|---|---|---|---|---|---|---|---|---|
| C.amata [1] | + | ||||||||
| C.cornelia [1] | +++ | ||||||||
| C.haemorrhoidalis [2] | +++ | + | |||||||
| C.japonica [4] | + | + | +++ | + | |||||
| C.splendens [4] | +++ | + | ++ | +++ | |||||
| C.virgo [3] | +++ | + | ++ | ||||||
| C.xanthostoma [1] | ++ | ||||||||
| Régions | Japon | Europe | Italie Japon | Japon | Europe Ouzbékistan | Italie | Japon | Hongrie Ouzbékistan | Allemagne Hongrie |
Chaque case indique qu’au moins une séquence d’un taxon appartient à l’ensemble mitochondrial considéré. Une ligne présente dans plusieurs colonnes traduit la dispersion des séquences de ce taxon ; une colonne contenant plusieurs taxons traduit un regroupement interspécifique apparent. Il s’agit de pistes d’enquête et non de preuves d’introgression. Les signes expriment l’importance relative de la représentation de chaque taxon dans les ensembles distingués sur l’arbre COI : +++ = présence abondante ; ++ = présence notable ; + = présence ponctuelle, limitée à un ou quelques spécimens. Cette appréciation qualitative concerne uniquement l’échantillon analysé. Elle ne mesure ni la fréquence de ces lignées dans les populations naturelles ni l’intensité d’une éventuelle introgression.
Annexe 2 – Arbre ITS1 (nucléaire)
Lecture de l’arbre ITS1 – Plusieurs groupes spécifiques montrent une cohésion appréciable : C. cornelia (BS 99), C. haemorrhoidalis (BS 87 pour l’ensemble), C. virgo (BS 90) et C. japonica (BS 84). Le complexe splendens reste peu résolu. Les regroupements locaux, tel celui de xanthostoma de Valencia et de Fergana (BS 83), ne suffisent pas à établir la phylogénie de l’ensemble du complexe.
| Attention : les regroupements fortement soutenus par le COI ne correspondent pas nécessairement à des limites spécifiques. L’arbre doit être confronté à la taxonomie, à la géographie, à l’ITS1 et, idéalement, à d’autres loci nucléaires indépendants. |
Citation – Deliry C. 2026 – Les « Ulriques mitochondriales » : quand les Caloptéryx racontent deux histoires évolutives. – Histoires Naturelles, Écrire la Nature en ligne (Paroles de Libellules) n°5, 19 septembre 2026.
NDLR – Cet article est parti d’un intérêt fort à comprendre la diversité des Calopteryx par l’étude de leur génétique. Loin d’avoir résolu les questionnements, de nouvelles vues se dégagent avec la notion d' »Ulriques mitochondriales ».
Proposez vos corrections ou ajustements par @mail – Vos contributions seront précisées dans l’article