
Cyrille Deliry – Niort le 14 septembre 2026
Résumé
Le complexe Trithemis annulata sensu latissimo présente une importante diversité morphologique et géographique entre les populations méditerranéennes, africaines continentales et insulaires de l’océan Indien. Une première analyse morphologique (Deliry, 2025) avait conduit à distinguer plusieurs ensembles correspondant aux taxons historiques Trithemis rubrinervis, T. annulata, T. haematina, T. selika et T. maia. La présente étude confronte cette hypothèse aux données moléculaires actuellement disponibles.
Les séquences publiques ont été inventoriées pour les marqueurs COI, ITS, 16S et ND1. Seul le COI possède actuellement un échantillonnage permettant une première analyse phylogénétique. L’arbre obtenu individualise un ensemble méditerranéo-européen comprenant des spécimens de Malte, d’Italie et de Crète, correspondant au taxon historique T. rubrinervis. Les spécimens africains attribués à T. annulata apparaissent en revanche répartis sur plusieurs lignées.
La concordance entre morphologie, géographie et COI soutient la reconnaissance de T. rubrinervis au rang spécifique. Les limites de T. annulata africaine restent à préciser. Les taxons insulaires T. haematina, T. selika et T. maia, morphologiquement différenciés, ne disposent pas encore d’un échantillonnage moléculaire permettant un test comparable.
I. Introduction
Trithemis annulata (Palisot de Beauvois, 1807) est traditionnellement considérée comme une espèce largement distribuée en Afrique et dans le bassin méditerranéen. Cette conception extensive réunit cependant des populations géographiquement éloignées et présentant une importante diversité morphologique.
Plusieurs taxons aujourd’hui associés à ce complexe ont historiquement été décrits séparément. C’est notamment le cas de Libellula rubrinervis de Selys Longchamps, 1841, décrite de Sicile, de Libellula haematina Rambur, 1842, de Libellula selika de Selys Longchamps in Pollen & van Dam, 1869, 1869, décrite de Madagascar, et de Trithemis maia Ris, 1915, des Comores.
Une première révision morphologique et iconographique de ces populations a été entreprise (Deliry 2025). L’examen comparatif des caractères alaires, du nombre d’anténodales, de la coloration des ptérostigmas, de la nervation, des derniers segments abdominaux, des appendices et des yeux faisait apparaître plusieurs ensembles morphogéographiques.
Ce travail conduisait notamment à réexaminer la distinction entre les populations africaines et méditerranéennes et à considérer séparément les taxons de l’océan Indien. Le présent travail prolonge cette démarche en confrontant l’hypothèse morphologique formulée antérieurement (Deliry 2025) aux données génétiques disponibles.
II. Hypothèse morphologique
L’analyse de Deliry (2025) conduit à considérer cinq ensembles principaux au sein de Trithemis annulata sensu latissimo.
Trithemis annulata rubrinervis — Libellula rubrinervis de Selys Longchamps, 1841 a été décrite de Sicile. La description historique du mâle indique une coloration rouge cramoisi avec une forte composante violacée : vertex et vésicule violet métallique, thorax rouge sombre à pulvérulence violacée et abdomen rouge cramoisi pouvant présenter une pruinosité bleu-violacé. Dans le matériel méditerranéen étudié, les yeux sont bicolores, rouges au sommet, marron vers l’avant et bleutés dans leur partie inférieure ; le ptérostigma est clair, ligné de noir en haut. Le nombre d’anténodales est faible, généralement 10½, parfois 11½. La terminaison abdominale est noire dorsalement dès S8 et demeure rouge sur les côtés dès S8 ; les appendices sont unicolores rouges clair.
Trithemis annulata annulata — Les populations examinées d’Afrique orientale présentent des yeux généralement unicolores foncés. Le ptérostigma est clair et ligné de noir en haut, mais peut devenir foncé. Le nombre d’anténodales est généralement de 11½, parfois 12½. La terminaison abdominale est noire dorsalement dès S8, tandis que la coloration rouge apparaît latéralement dès S7. Les appendices sont contrastés, caractère qui les distingue notamment des appendices uniformément rouges de rubrinervis. Les limites de ce taxon africain demeurent toutefois à préciser et est regardé ici sensu lato.
Trithemis haematina haematina — Dans les Mascareignes, les yeux sont unicolores foncés à contrastés, avec une partie supérieure plus sombre. Le ptérostigma est clair, ligné de noir en haut et plus faiblement en bas, mais devient rapidement foncé. Le nombre d’anténodales est élevé, généralement 14½ à 15½. L’abdomen devient noir dès S8, qui porte deux marques rougissantes au milieu des côtés ; les appendices sont sombres ou très légèrement contrastés.
Trithemis haematina selika — Les populations malgaches attribuées à selika présentent des yeux nettement bicolores, rouges au sommet et bleus dans leur partie inférieure, ainsi qu’un ptérostigma foncé. Le nombre d’anténodales est généralement très élevé, autour de 16½, mais peut descendre jusqu’à 12½. L’abdomen est noir dès S8, qui porte deux marques rosées, arrondies et symétriques vers le sommet ; les appendices sont sombres.
Trithemis haematina maia — Le taxon des Comores, dont Mayotte, demeure insuffisamment caractérisé. Les yeux paraissent unicolores [?] et le ptérostigma sombre [?]. Contrairement à ce qui était indiqué dans le texte précédent, le tableau suggère un faible nombre d’anténodales [?]. L’abdomen est noir dès S8 et présente, comme chez selika, deux marques rosées arrondies et symétriques vers le sommet. Les appendices ne sont pas suffisamment documentés dans le matériel considéré.

III. Données moléculaires et méthodes
Les données génétiques disponibles dans les bases publiques ont été inventoriées pour les marqueurs COI, ITS, 16S et ND1. Plusieurs de ces séquences proviennent des travaux moléculaires consacrés à la diversification du genre Trithemis, notamment ceux de Damm et collaborateurs.
| Accession | Voucher / spécimen | Localité | Taxon | Marqueur | Utilisation |
|---|---|---|---|---|---|
| MW377890 | MIB:ZPL:08609 | Italie | Trithemis annulata | COI | Non retenu : fragment non superposable au jeu COI principal |
| MN701557 | MT74_Tann_2018_2 | Malte | Trithemis annulata | COI | Retenu |
| MN701545 | MT74_Tann_2018_1 | Malte | Trithemis annulata | COI | Retenu |
| MT298675 | MIB:ZPL:08605 | Inconnue | Trithemis annulata | COI | Retenu |
| MT298674 | MIB:ZPL:08611 | Italie | Trithemis annulata | COI | Retenu |
| MT298673 | MIB:ZPL:08609 | Italie | Trithemis annulata | COI | Retenu |
| LC366176 | RF2435 | Crète, Grèce | Trithemis annulata | ITS | Marqueur insuffisamment représenté |
| LC366770 | RF2435 | Crète, Grèce | Trithemis annulata | COI | Retenu |
| LC366473 | RF2435 | Crète, Grèce | Trithemis annulata | 16S | Marqueur insuffisamment représenté |
| KX399384 | WGH8 | Malte | Trithemis annulata | COI | Retenu |
| EU183267 | Ta119B | Namibie | Trithemis annulata | 16S + ARNt-Leu + ND1 | Marqueurs insuffisamment représentés |
| KU566417 | RMNH.INS.505344 | Kiubo, Katanga, R.D. Congo | Trithemis annulata | COI | Retenu |
| GU323102 | T_annRehA | Rehoboth, Namibie | Trithemis annulata | 16S + ARNt-Leu + ND1 | Marqueurs insuffisamment représentés |
| FJ358480 | Ta120B | Namibie | Trithemis annulata | COI | Retenu |
| FJ358479 | Ta119C | Namibie | Trithemis annulata | COI | Retenu |
| FJ358438 | T.a119A | Namibie | Trithemis annulata | ND1 | Marqueur insuffisamment représenté |
| GU323149 | T_annRehA | Rehoboth, Namibie | Trithemis annulata | 16S | Marqueur insuffisamment représenté |
| GU323055 | T_annRehA | Rehoboth, Namibie | Trithemis annulata | ITS | Marqueur insuffisamment représenté |
| MT298676 | MIB:ZPL:08604 | Inconnue | Trithemis annulata | COI | Retenu |
| GU323036 | T_selMA | Madagascar | Trithemis selika | ITS | Marqueur insuffisamment représenté |
| GU323131 | T_selMA | Madagascar | Trithemis selika | 16S | Marqueur insuffisamment représenté |
| GU323083 | T_selMA | Madagascar | Trithemis selika | 16S + ARNt-Leu + ND1 | Marqueurs insuffisamment représentés |
| LC476971 | — | Basrah, Irak | Trithemis annulata | COI | Non retenu : fragment trop court (222 pb) |
Les séquences ont été séparées par locus puis alignées avec MUSCLE (Edgar, 2004) sous MEGA 12. Les alignements ont été contrôlés afin d’écarter les fragments trop courts ou ne recouvrant pas suffisamment la région homologue.
L’objectif initial était de comparer séparément les phylogénies COI, ITS, 16S et ND1. Toutefois, ITS, 16S et ND1 ne comprennent qu’un nombre trop réduit de taxons indépendants pour fournir des arbres réellement informatifs. Seul le COI a donc été retenu pour l’analyse phylogénétique.
L’arbre COI a été reconstruit par Maximum Likelihood sous MEGA 12, avec évaluation du soutien des branches par 1 000 réplications de bootstrap.
IV. Données moléculaires et méthodes
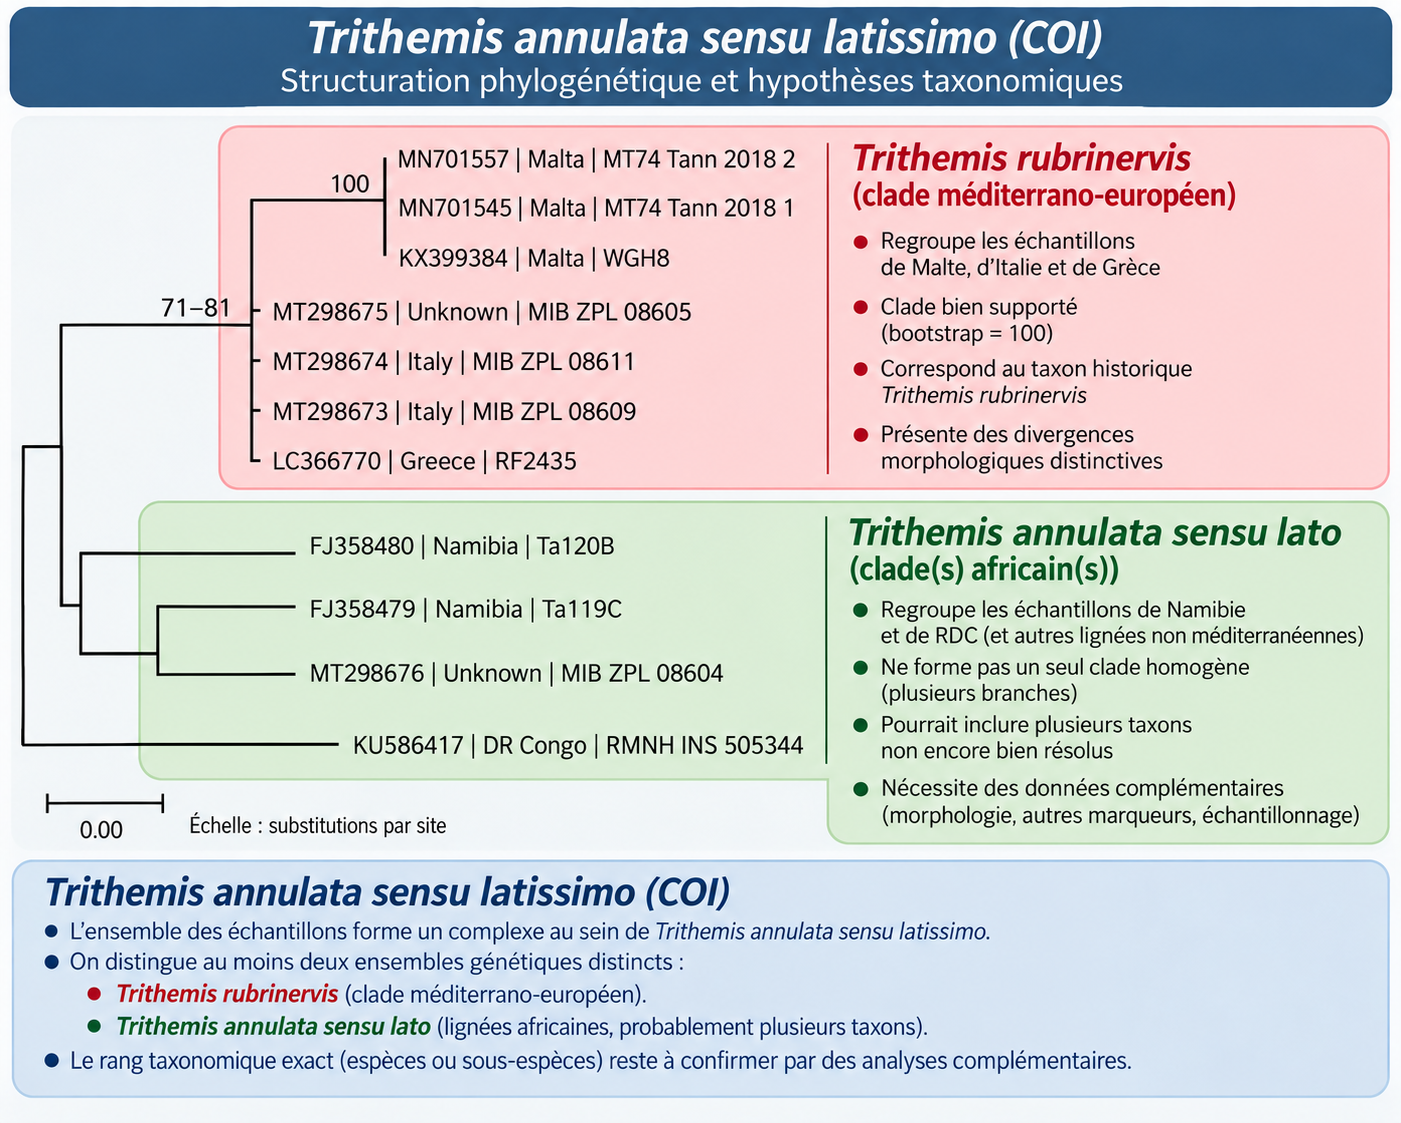
Le COI met en évidence une structuration géographique nette.
Un premier ensemble rassemble les spécimens de Malte, d’Italie et de Grèce. Les deux séquences maltaises MN701557 et MN701545 constituent un groupe fortement soutenu (bootstrap = 100), auquel se rattache KX399384, également originaire de Malte. Les séquences italiennes MT298673 et MT298674 ainsi que LC366770 de Crète appartiennent au même ensemble. MT298675, dont la provenance reste indéterminée, s’y rattache également.
Ce groupe correspond géographiquement à celui attribué dans l’analyse morphologique au taxon historique Trithemis rubrinervis.
Les spécimens africains présentent une organisation différente. FJ358480 et FJ358479 de Namibie, MT298676 et KU566417 de République démocratique du Congo se répartissent sur plusieurs branches. Les spécimens africains actuellement attribués à T. annulata ne constituent donc pas, dans notre échantillonnage, un ensemble COI homogène.
V. Discussion
Le résultat principal réside dans la concordance entre l’hypothèse morphologique antérieure de Deliry (2025) et la structuration observée avec le COI.
L’analyse morphologique avait conduit à distinguer les populations méditerranéennes des populations africaines et à réexaminer le taxon historique rubrinervis. L’analyse COI individualise précisément un ensemble comprenant Malte, l’Italie et la Grèce. Cette convergence entre morphologie, géographie et génétique mitochondriale soutient la reconnaissance de Trithemis rubrinervis comme espèce distincte.
La situation de T. annulata africaine apparaît plus complexe. Les quelques spécimens disponibles se distribuent sur plusieurs branches et ne constituent pas le pendant africain homogène du groupe méditerranéen. Le nom Trithemis annulata sensu lato est donc conservé provisoirement pour ces populations. Un échantillonnage africain plus important sera nécessaire pour déterminer si plusieurs espèces sont actuellement réunies sous ce nom.
L’analyse morphologique distingue également trois ensembles dans l’océan Indien : T. haematina dans les Mascareignes, T. selika à Madagascar et T. maia aux Comores. Ces distinctions sont soutenues par plusieurs caractères morphologiques combinés (Deliry, 2025), mais ne peuvent actuellement être confrontées au COI faute d’un échantillonnage moléculaire suffisant.
VI. Proposition taxonomique
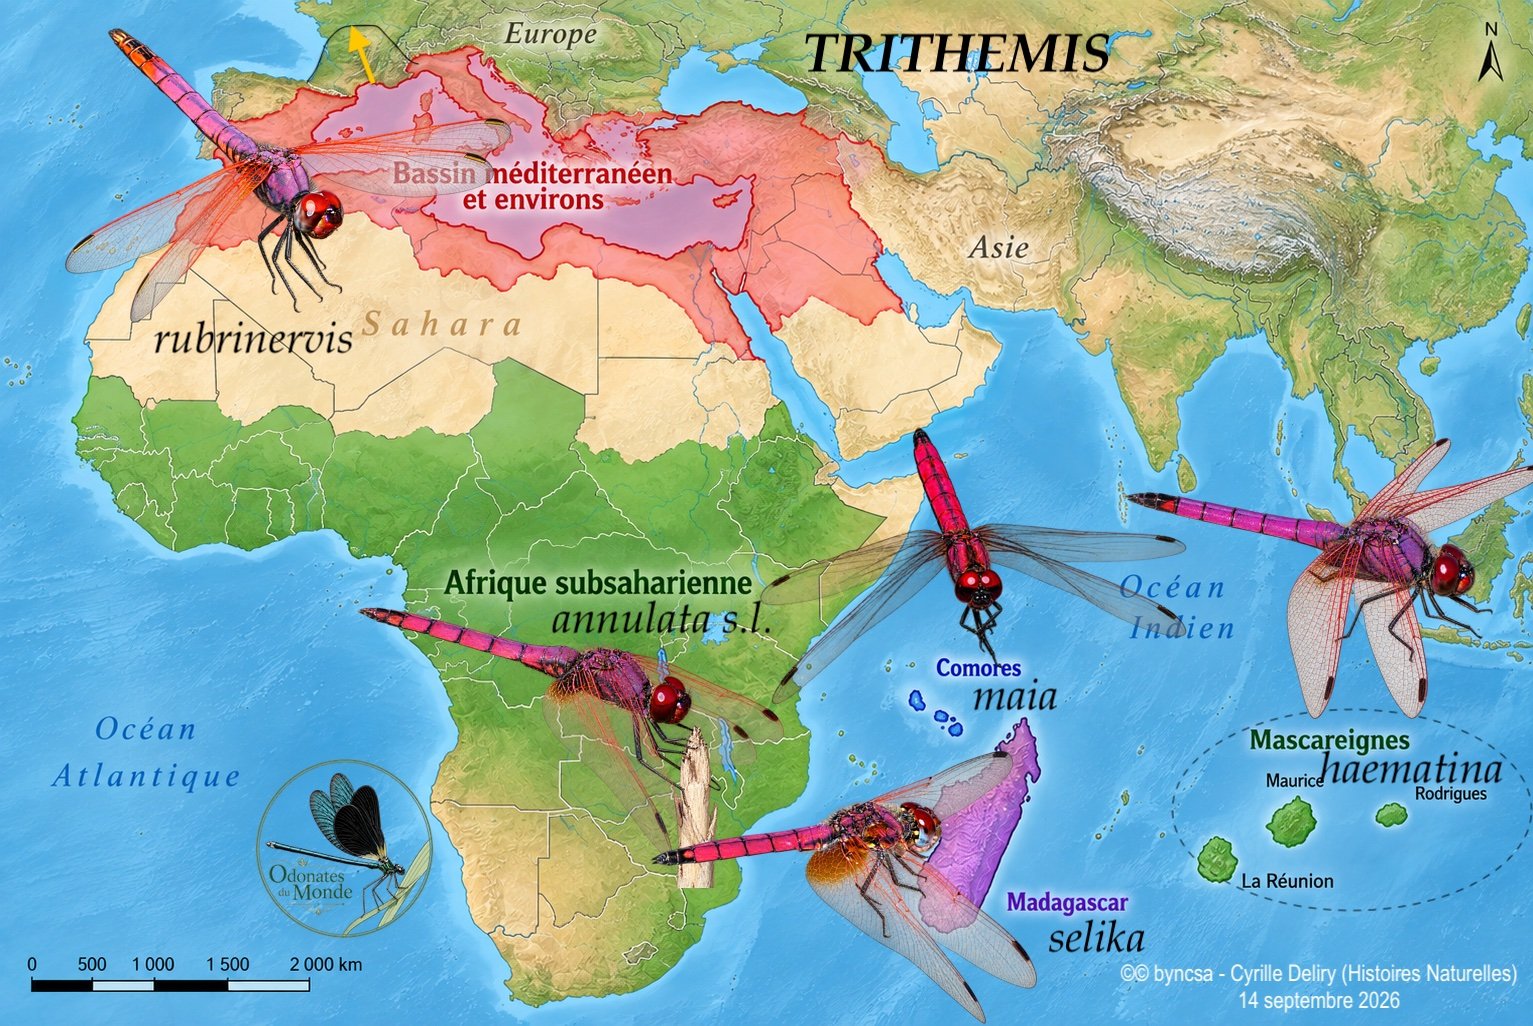
La confrontation des données conduit à retenir comme hypothèse de travail cinq espèces au sein de Trithemis annulata sensu latissimo :
1.Trithemis annulata (Palisot de Beauvois, 1807) — Afrique subsaharienne. Limites spécifiques encore à préciser ; considéré ici sensu lato.
2.Trithemis rubrinervis (de Selys Longchamps, 1841) — Bassin méditerranéen et régions adjacentes. Individualisation soutenue par la morphologie et le COI.
3. Trithemis haematina (Rambur, 1842) — Mascareignes. Individualisation principalement morphologique.
4. Trithemis selika (de Selys Longchamps in Pollen & van Dam, 1869) — Madagascar. Individualisation principalement morphologique.
5.Trithemis maia Ris, 1915 — Comores. Individualisation principalement morphologique.
Cette proposition ne donne donc pas exactement le même niveau de preuve aux cinq espèces : rubrinervis bénéficie actuellement d’une concordance morphologique et moléculaire, tandis que les trois taxons de l’océan Indien restent essentiellement définis morphologiquement. L’hétérogénéité observée au sein de annulata africaine indique enfin qu’une diversité supplémentaire pourrait subsister dans cet ensemble.
Conclusion
L’analyse morphologique de Deliry (2025) avait conduit à distinguer plusieurs ensembles au sein du complexe Trithemis annulata sensu latissimo. L’étude des données génétiques disponibles apporte aujourd’hui un premier test indépendant de cette hypothèse.
Parmi les marqueurs recensés, seul le COI dispose actuellement d’un échantillonnage permettant une analyse phylogénétique suffisamment informative. Son résultat principal est l’individualisation d’un ensemble méditerranéo-européen comprenant Malte, l’Italie et la Crète, correspondant au taxon historique Trithemis rubrinervis. Cette concordance entre morphologie, géographie et COI soutient sa reconnaissance au rang spécifique.
Les populations africaines attribuées à T. annulata présentent au contraire une importante structuration et sont provisoirement conservées sous Trithemis annulata sensu lato, l’examen morphologique étant partiellement réalisé et les premiers éléments du COI montrant une probable hétérogénéité.
Enfin, les caractères morphologiques soutiennent la distinction de T. haematina dans les Mascareignes, T. selika à Madagascar et T. maia aux Comores. Leur statut devra cependant être confronté à de nouvelles données moléculaires.
L’ensemble conduit ainsi à proposer une organisation provisoire du complexe Trithemis annulata sensu latissimo en cinq espèces, dont la délimitation pourra être testée et précisée par un échantillonnage moléculaire plus étendu.
Bibliographie principale
Damm S. 2009 – Conservation Genetics, Speciation and Biogeography in African Dragonflies. – Dissertation, Gottfried Wilhelm Leibniz Universität Hannover, Hannover.
Damm S., Dijkstra K.D. & Hadrys H. 2010a – Red drifters and dark residents: the phylogeny and ecology of a Plio-Pleistocene dragonfly radiation reflects Africa’s changing environment (Odonata, Libellulidae, Trithemis). – Molecular Phylogenetics and Evolution, 54 : 870–882.
Damm S., Schierwater B. & Hadrys H., 2010b – An integrative approach to species discovery in odonates: from character-based DNA barcoding to ecology. Molecular Ecology, 19 : 3881–3893.
de Selys Longchamps E. 1841 – Nouvelles Libellulidées d’Europe. – Revue Zoologique, 4 : 243-246. – ONLINE
de Selys Longchamps E. & Hagen H.A. 1850 – Revue des Odonates ou Libellules d’Europe. – Muquardt, Bruxelles & Leipzig, Roret, Paris : XXII + 408 pp. + 11 pl. – ONLINE
Deliry C. 2019 – Trithemis haematina, une bonne espèce. – Nomina Odonata, 20 janvier 2019. – PDF
[Deliry C. 2024] – Être ou ne pas être Trithemis annulata ? – Odonates du Monde, communiqué du 1er octobre 2024, révisé le 9 février 2025. – ONLINE
[Deliry, C. 2025] – Illustrations de Trithemis (annulata, haematina). – Histoires Naturelles, Communiqué du 20 février 2025. – ONLINE
[Deliry C. 2026a] – Trithemis annulata – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 88240 du 14.09.2026. – odonates.net
[Deliry C. 2026b] – Trithemis haematina – In : Odonates du Monde (Histoires Naturelles) (2004-[2026]) – Version 88238 du 14.09.2026. – odonates.net
Edgar R.C. 2004 – MUSCLE: multiple sequence alignment with high accuracy and high throughput. – Nucleic Acids Research, 32 : 1792–1797.
Kirby W.F. 1890 – A Synonymic Catalogue of Neuroptera Odonata, or Dragon-flies, with an Appendix of Fossil Species. – London.
Kumar S. & al. 2024 – MEGA12: Molecular Evolutionary Genetic Analysis Version 12 for Adaptive and Green Computing. – Molecular Biology and Evolution, 41.
Lucas H. 1849 – Exploration scientifique de l’Algérie. 3e partie + Atlas. – ONLINE
Pollen F.L. & van Dam D.C. 1869 – Recherches sur la Faune de Madagascar et de ses dépendances. – de Selys Longchamps E. In : Partie 5. – Insectes de Madagascar : Odonates recueillis à Madagascar, aux îles Mascareignes et Comores : 1869 : 3 + 15-25. – ONLINE
Rambur P. 1842 – Histoire naturelle des insectes : Névroptères. – Roret, Paris : 534 pp. – ONLINE
Ris F. 1911-1912 – Libellulinen II. – Collections Zoologiques du baron Edm. de Selys Longchamps, fasc. XII et XIII (1911), fasc. XIV (1912), Catalogue systématique et descriptif, Hayez, Bruxelles : 385-836 [fac. XII : 15 mars 1911 : 385-528, fasc. XIII : 30 octobre 1911 : 529-700, fasc. XIV : 25 juillet 1912 : 701-836]. – ONLINE
Ris F. 1915 – Eine kleine Sammlung Libellen von den Comorischen Inseln (Odonata). – Entomologische Mitteilungen Hamburg, 4 (4/6) : 137-146 + fig.
Annexe : combinaisons taxonomiques et typification
Entre 1839 et 1869, les différentes formes du complexe sont décrites comme espèces distinctes, principalement sous Libellula (lateralis, annulata, rubrinervis, haematina, selika) ou Tramea (erythraea). À la fin du XIXᵉ siècle, leur transfert progressif dans le genre Trithemis maintient encore plusieurs espèces distinctes, notamment annulata, rubrinervis, haematina et selika. Au début du XXᵉ siècle, Ris amorce au contraire une conception très extensive de T. annulata, tandis que maia est décrite comme sous-espèce de selika. Cette tendance au regroupement culmine avec Pinhey (1962) puis les catalogues ultérieurs : rubrinervis est synonymisée avec annulata et haematina généralement abaissée au rang de sous-espèce, tandis que selika et maia conservent des traitements variables. En 2025–2026 je réexamine cette conception sensu latissimo et revient à une subdivision en cinq ensembles géographiques et morphologiques, proposés ici au rang spécifique : T. annulata, T. rubrinervis, T. haematina, T. selika et T. maia.
- Trithemis annulata
- Libellula annulata Palisot de Beauvois, 1807 [erroné : 1805] – Type : Nigéria : mâle, Muséum de Bruxelles.
- Orthetrum annulatum [Kirby 1890 (Afrique)]
- Trithemis annulata [Ris 1908, Bridges 1994, Paulson & al. [2026], Deliry [2026a]]
- Trithemis annulata sensu latissimo [Ris 1912 (Sénégal, Algérie (Nubie), Cameroun, Madagascar, Abyssinie, Egypte, Sardaigne), Ris 1916 (Gambie, Sahara, Tunisie), Ris 1921 (Afrique du Sud), Pinhey 1962 (Afrique, Italie, Syrie, Iraq, Arabie), Davies & Tobin 1985 (Afrique)]
- Trithemis annulata annulata [Steinmann 1997 (de l’Italie à l’Arabie, îles méditerranéennes, Afrique, Madagascar)] [= sensu latissimo] [sous-espèce : Deliry [2025] (Zone subsaharienne), [2026b]]
- Trithemis annulata (Palisot de Beauvois, 1807) [s.str. : hic [2026]]
- Libellula ferruginea Hagen, 1840 (nec Fabricius 1775) [erroné : 1839]
- synonyme de Trithemis annulata [Deliry [2026a]]
- synonyme de Trithemis annulata annulata [hic [2026]]
- Trithemis violacea Sjöstedt, 1899 [erroné : 1900] – Type : Cameroun : mâle, Muséum de Stokhlom.
- synonyme de Trithemis annulata [Pinhey 1962, Davies & Tobin 1985, Bridges 1994, Paulson & al. [2026], Deliry [2026a] ]
- synonyme de Trithemis annulata annulata [Steinmann 1997] [= sensu latissimo] [Deliry [2025], hic [2026]]
- Libellula annulata Palisot de Beauvois, 1807 [erroné : 1805] – Type : Nigéria : mâle, Muséum de Bruxelles.
- Trithemis haematina
- Libellula haematina Rambur, 1842 – Type : Madagascar, femelle, MNHN Paris / Muséum de Bruxelles selon Pinhey (1962).
- Libellula haematina sensu de Selys Longchamps 1850 [de Selys Longchamps & Hagen 1850 (Mascareignes seulement)]
- partim : Trithemis haematina [Brauer 1868, Kirby 1890 (île Maurice), Ris 1912 (île Maurice, Madagascar) ; Bridges 1994 (double entrée et mélanges : espèce // synonyme de Trithemis annulata ; Deliry [2026a]]
- partim : Trithemis annulata haematina [Pinhey 1962 (île Maurice, La Réunion, Madagascar), Davies & Tobin 1985, Steinmann 1997 (Madagascar, île Maurice, La Réunion)]
- partim : synonyme de Trithemis annulata [Bridges 1994 (île de France (Maurice), Sénégal, Sicile : sic! = sensu latissimo !)) ; Paulson & al. [2026]]
- Trithemis annulata haematina
- Trithemis haematina [Deliry [2020], [2025]]
- Trithemis haematina haematina (Rambur, 1842) [Deliry [2025] (Mascareignes)]
- Trithemis haematina (Rambur, 1842) [hic [2026]]
- Libellula haematina var. Rambur, 1842 [de Selys Longchamps & Hagen 1850]
- [Libellula haematodes] [musée Bérol. Belgique] (nec Burmeister, 1839) [synonyme : de Selys Longchamps & Hagen 1850, Deliry [2026a], hic [2026]]
- Tramea erythraea Brauer, 1867 – Type : île Maurice, (non précisé), Muséum de Vienne.
- Tramea erythraea [Kirby 1890]
- Trithemis erythraea [Karsch 1893, 1894 ; Calvert 1896]
- synonyme de Trithemis annulata haematina [Pinhey 1962]
- synonyme de Trithemis haematina [sic! : Bridges 1994]
- synonyme de Trithemis haematina haematina [Deliry [2025], [2026b], hic [2026]]
- synonyme de Trithemis annulata [Paulson & al. [2026]]
- Trithemis ramburii Kirby, 1890 (nomen novum)
- Trithemis annulata ramburii [Nordic Code Center [2004]]
- synonyme de Trithemis haematina haematina [Deliry [2025], [2026b], hic [2026]]
- Libellula haematina Rambur, 1842 – Type : Madagascar, femelle, MNHN Paris / Muséum de Bruxelles selon Pinhey (1962).
- Trithemis maia
- Trithemis selika maia Ris, 1915 – Type : Mayotte, Ann Arbor Muséum / désigné par Kommody & Gloyd (1962 in Bridges 1994).
- Trithemis selika maia [Ris 1916 (Comores), Pinhey 1962, Davies & Tobin 1985, Steinmann 1997 (Madagascar, Comores)]
- Trithemis maia Ris, 1915 [Bridges 1994, Paulson & al. [2026], hic [2026]]
- Trithemis haematina maia [Deliry [2025] (Comores), [2026b]]
- Trithemis rubrinervis
- Libellula rubrinervis de Selys Longchamps, 1841 – Type : Sicile : mâle, Muséum de Bruxelles.
- Trithemis rubrinervis [de Selys Longchamps 1887 (Sicile, Algérie, Egypte, Liban, Chypre), Kirby 1890 (Sicile, Afrique, Syrie)]
- synonyme de Trithemis annulata [Pinhey 1962, Davies & Tobin 1985, Brigdes 1994, Paulson & al. [2026]]
- synonyme de Trithemis annulata annulata [Steinmann 1997] [= sensu latissimo]
- Trithemis annulata rubrinervis [Deliry [2025] (Bassin méditerranéen, Asie occidentale]
- Trithemis rubrinervis (de Selys Longchamps, 1841) [hic. [2026]]
- Libellula obsoleta Rambur, 1842 – Type : localité inconnue : femelle, collection Serville.
- Trithemis obsoleta [Kirby 1890]
- synonyme de Trithemis annulata [Pinhey 1962 , Davies Tobin 1985, Bridges 1994, Paulson & al. [2026], Deliry [2025], [2026b]]
- synonyme de Trithemis annulata annulata [Steinmann 1997] [= sensu latissimo] [hic [2026]]
- Trithemis scorteccii Nielsen, 1935 – Type : Lybie : mâle, collection Nielsen.
- Trithemis annulata scorteccii [Rayah & Zubeir 1948 (Soudan), Pinhey 1962, Davies & Tobin 1985, Steinman 1997 (de la Libye au Soudan)]
- synonyme de Trithemis annulata [Davies & Tobin 1985, Bridges 1994, Paulson & al. [2026], Deliry [2026a]
- Trithemis annulata f. scorteccii Nielsen, 1935 [Deliry [2025]]
- Trithemis rubrinervis f. scorteccii Nielsen, 1935 [hic [2026]]
- Trithemis annulata sensu Ander, 1928 [Anders 1928 (Sicile, Syrie, Egypte)]
- Libellula rubrinervis de Selys Longchamps, 1841 – Type : Sicile : mâle, Muséum de Bruxelles.
- Trithemis selika
- Libellula lateralis Burmeister, 1839 – Type : île St Johana : femelle, collection Sommer.
- Orthetrum laterale [Kirby 1890]
- synonyme de Trithemis selika [Davies & Tobin 1985, Ris 1912]
- synonyme de Trithemis arteriosa [Buccholtz 1959]
- Trithemis lateralis (Burmeister, 1839) [Calvert 1898]
- Trithemis lateralis (Burmeister, 1839) (nomen dubium) [Deliry [2025] (Anjouan), hic [2026]]
- Libellula selika de Selys Longchamps in Pollen & van Dam, 1869 – Type : Madagascar : mâle, Muséum de Bruxelles.
- Trithemis selika (de Selys Longchamps in Pollen & van Dam, 1869) [Kirby 1890 (Madagascar), Ris 1912, Pinhey 1962 (Madagascar, île de St Johana), Bridges 1994, Paulson & al. [2026], hic [2026]]
- Trithemis selika selika [Steinmann 1997 (Madagascar, île de St Johana)]
- Trithemis haematina selika [Deliry [2025] (Madagascar, [2026b]]
- Trithemis selika (de Selys Longchamps in Pollen & van Dam, 1869) [Kirby 1890 (Madagascar), Ris 1912, Pinhey 1962 (Madagascar, île de St Johana), Bridges 1994, Paulson & al. [2026], hic [2026]]
- Libellula rubrinervis de Selys Longchamps, 1841 partim [synonyme : Deliry [2026b], hic [2026]]
- Libellula lateralis Burmeister, 1839 – Type : île St Johana : femelle, collection Sommer.


