
La présence d’Ischnura senegalensis (Rambur, 1842) en France métropolitaine a été évoquée au détour d’une de mes conversations il y a quelques années, comme pouvant résulter d’une introduction accidentelle par l’intermédiaire de plantes aquatiques exotiques. En l’absence de localité, de spécimen ou de publication permettant actuellement de documenter cette information, elle doit rester considérée comme hypothétique. Le cas est néanmoins parfaitement plausible au regard des nombreuses introductions accidentelles d’Odonates exotiques constatées ailleurs en Europe, principalement par la filière des plantes pour aquariums et bassins.
Ce phénomène est anciennement connu. Des Odonates tropicaux ont été observés dans des serres, aquariums et établissements horticoles de plusieurs pays européens depuis plusieurs décennies. Il est révélé par un cas particulièrement spectaculaire pour les serres d’un grossiste de plantes aquatiques situé près de Wels, en Autriche : entre 1991 et 2011, plus de 1 000 imagos exotiques y ont été collectés et 23 espèces ont pu être déterminées. À l’échelle européenne, la synthèse de Laister & al. (2014) portait à 41 le nombre de taxons exotiques envisagés. Je compile ici les autres cas révélés par la littérature que j’ai pu consulter ; l’exclusion des données incertaines ou imprécises ramène à 37 le nombre d’espèces retenues.
Le transport involontaire d’œufs ou de jeunes larves fixés aux végétaux aquatiques constitue la voie d’introduction la plus connue : le développement peut se poursuivre après l’arrivée des plantes et l’insecte n’être découvert qu’au moment de l’émergence. D’autres mécanismes existent cependant, depuis le transport d’adultes avec des marchandises jusqu’aux observations en milieu naturel dont l’origine demeure indéterminée.
Inventaire par espèce
- Agriocnemis femina (Brauer, 1868) – Autriche (Laister & al. 2014), Pays-Bas (Wasscher & Bos 2000).
- Agriocnemis pygmaea (Rambur, 1842) – Allemagne (Martens & Griese 2009, Seehausen 2019), Autriche (Laister & al. 2014), Suède (Billqvist 2014).
- Anax gibbosulus Rambur, 1842 – Grande-Bretagne (Brooks 1988).
- Anax guttatus (Burmeister, 1839) – Allemagne (Seehausen 2018), Finlande (Valtonen 1985), Grande-Bretagne (Brooks 1988).
- Argia fumipennis (Burmeister, 1839) – Grande-Bretagne (Brooks 1988).
- Argiocnemis rubescens de Selys Longchamps, 1877 – Autriche (Laister & al. 2014).
- Brachydiplax chalybea (Brauer, 1868) – Autriche (Laister & al. 2014).
- Celithemis eponina (Drury, 1773) – Pays-Bas (Laister & al. 2014).
- Ceriagrion cerinorubellum (Brauer, 1865) – Allemagne (Kipping 2006), Autriche (Laister & al. 2014), Grande-Bretagne (Brooks 1988).
- Ceriagrion chaoi Schmidt, 1964 – Autriche (Laister & al. 2014).
- Crocothemis servilia (Drury, 1773) – Allemagne (Seehausen & von Blanckenhagen 2012, Seehausen 2019), Autriche (Laister & al. 2014), Grande-Bretagne (Brooks 1988, Parr 2010), Pays-Bas (Waning Vos 2005, Wasscher & Ruiter 2005), Pologne (Buczyński & Bielak-Bielecki 2012), Suède (Billqvist 2014).
- Diplacodes trivialis (Rambur, 1842) – Autriche (Laister & al. 2014).
- Enallagma signatum (Hagen, 1861) – Grande-Bretagne (Brooks 1988).
- Epophthalmia vittigera (Rambur, 1842) – Autriche (Laister & al. 2014).
- Erythemis simplicicollis (Say, 1839) – Grande-Bretagne (Brooks 1988).
- Hydrobasileus croceus (Brauer, 1867) – Autriche (Laister & al. 2014).
- Ictinogomphus decoratus (de Selys Longchamps, 1854) – Pays-Bas (Lieftinck 1978).
- Ictinogomphus rapax (Rambur, 1842) – Autriche (Laister & al. 2014).
- Ischnura posita (Hagen, 1861) – Grande-Bretagne (Brooks 1988).
- Ischnura senegalensis (Rambur, 1842) – Allemagne (Kipping 2006, Benken & Kommander 2011, Lambertz & Schmied 2011, Seehausen 2019), Autriche (Laister & al. 2014, Seehausen 2019), Belgique (Adriaens & De Knijf 2015), Finlande (Valtonen 1985), France (mention hypothétique, non documentée), Grande-Bretagne (Brooks 1988, Parr 2010), Pologne (Buczyński & Obłoza 2018), Suisse (Seehausen 2019).
- Neurothemis fluctuans (Fabricius, 1793) – Autriche (Laister & al. 2014), Finlande (Valtonen 1985), Pays-Bas (Wasscher & Goutbeek 1998).
- Orthetrum chrysis (de Selys Longchamps, 1891) – Autriche (Laister & al. 2014).
- Orthetrum chrysostigma (Burmeister, 1839) – Allemagne (Seehausen 2018).
- Orthetrum japonicum (Uhler, 1858) – Finlande (Valtonen 1985).
- Orthetrum sabina (Drury, 1770) – Allemagne (Seehausen 2014, Seehausen 2019, Schiel & Martens 2021), Autriche (Laister & al. 2014), Grande-Bretagne (Brooks 1988).
- Orthetrum testaceum (Burmeister, 1839) – Autriche (Laister & al. 2014).
- Pantala flavescens (Fabricius, 1798) – Allemagne (Kipping 2006), Grande-Bretagne (Ford 1954, Parr 2010).
- Pseudagrion australasiae de Selys Longchamps, 1876 – Autriche (Laister & al. 2014).
- Pseudagrion microcephalum (Rambur, 1842) – Allemagne (Martens & Schiel 2009, Seehausen & von Blanckenhagen 2012, Seehausen 2019), Autriche (Laister & al. 2014), Belgique (Adriaens & De Knijf 2015), Espagne (Díaz Martínez & Conesa García 2021), Finlande (Valtonen 1985), Pologne (Buczyński, Bobrek & Bobrek 2020).
- Rhodothemis rufa (Rambur, 1842) – Grande-Bretagne (Agassiz 1981, Brooks 1988, Laister & al. 2014).
- Rhyothemis phyllis (Sulzer, 1776) – Autriche (Laister & al. 2014).
- Sympetrum eroticum (de Selys Longchamps, 1883) – Lituanie (Stanionyte 1989, Bernard 2005, Laister & al. 2014).
- Tholymis tillarga (Fabricius, 1798) – Autriche (Laister & al. 2014).
- Tramea transmarina Brauer, 1867 – Autriche (Laister & al. 2014), Grande-Bretagne (Agassiz 1981, Brooks 1988, Laister & al. 2014).
- Trithemis aurora (Burmeister, 1839) – Autriche (Laister & al. 2014).
- Urothemis bisignata Brauer, 1868 – Grande-Bretagne (Agassiz 1981, Brooks 1988).
- Urothemis signata (Rambur, 1842) – Autriche (Laister & al. 2014).
Quelques éléments remarquables
La répartition de ces données est très inégale. Cette disparité reflète manifestement autant les circuits commerciaux et les lieux de production des végétaux aquatiques que l’intensité des recherches et la publication des observations. L’Autriche occupe une place exceptionnelle en raison du suivi conduit pendant vingt ans dans les serres de Wels (Laister & al. 2014) : 23 espèces y furent déterminées et certaines y apparurent en nombres considérables. Neurothemis fluctuans y est représentée par 262 imagos, Agriocnemis femina par 210, Pseudagrion microcephalum par 208, Crocothemis servilia par 105, Orthetrum sabina par 61 et Ischnura senegalensis par 46.
L’Allemagne constitue l’autre ensemble particulièrement bien documenté, mais dans un contexte sensiblement différent : les données sont dispersées entre de nombreux aquariums, commerces et particuliers. Ischnura senegalensis y est particulièrement remarquable puisque Seehausen (2019) recense 128 individus provenant de 33 sites répartis dans dix Länder.
Quelques espèces ressortent par leur répétition dans plusieurs pays. Ischnura senegalensis, Pseudagrion microcephalum et Crocothemis servilia sont les exemples les plus manifestes. Leur fréquence ne traduit donc pas seulement un événement exceptionnel : elle révèle une voie d’introduction récurrente associée aux échanges internationaux de végétaux aquatiques.
Le cas de Pseudagrion microcephalum en Pologne est particulièrement instructif. L’individu découvert à Cracovie pourrait résulter non d’un simple œuf directement importé des tropiques, mais d’une succession de plusieurs générations effectuées dans des serres européennes chauffées avant l’arrivée de la plante en animalerie. Cette possibilité suggère que certaines espèces peuvent maintenir des populations discrètes au sein même des structures de production horticole et être redistribuées secondairement à travers le continent.
La présence d’une espèce dans un pays ne signifie par ailleurs ni son établissement dans la nature, ni même nécessairement sa libération à l’extérieur. Une grande partie des données correspond à des larves ou à des adultes émergés dans des aquariums, serres ou installations commerciales. Il s’agit donc avant tout d’un phénomène de transport biologique accidentel.
Quelques observations relèvent en outre d’autres mécanismes. Pantala flavescens a ainsi été trouvée dans des cargaisons de bananes en Allemagne et en Grande-Bretagne. Dans les données considérées ici, la France tranche fortement avec les pays voisins. Un seul Odonate exotique y apparaît explicitement dans la synthèse européenne de Laister & al. (2014), Sympetrum infuscatum, mais cette donnée elle-même doit aujourd’hui être remise en question. Aucun cas français documenté d’Odonate tropical ayant émergé d’un aquarium, d’une serre de plantes aquatiques ou d’un bassin alimenté avec des plantes importées n’est fourni par cet ensemble bibliographique.
Quand Crocothemis servilia s’établit hors de son aire d’origine
Le devenir de Crocothemis servilia hors de son Asie d’origine montre toutefois que de telles introductions ne sont pas nécessairement sans lendemain. Cette espèce, régulièrement transportée en Europe avec les plantes aquatiques, s’est au contraire établie durablement dans plusieurs régions tropicales ou subtropicales situées hors de son aire originelle. En Floride (États-Unis), un premier spécimen est reconnu de la région de Fort Lauderdale dès 1975 et une population reproductrice fut découverte en 1977 dans le comté de Dade : plusieurs mâles territoriaux y côtoyaient des individus très récemment émergés, indiquant une reproduction locale (Paulson 1978). Dès le début des années 1980, l’espèce était signalée dans plusieurs autres comtés de Floride, confirmant son établissement et son expansion (Daigle & Rutter 1984). Une évolution comparable s’est produite dans l’archipel d’Hawaï : découverte à O‘ahu en 1994, elle y devint rapidement commune dans certains milieux aquatiques de basse altitude avant d’être signalée également à Kaua‘i (Polhemus 1995). Laister & al. (2014) mentionnent en outre son établissement à Cuba. Le mécanisme d’introduction diffère dans son niveau de documentation selon les régions. En Floride, Paulson (1978) constate l’établissement d’une espèce introduite sans identifier le vecteur initial. L’hypothèse d’un transport anthropique, notamment avec des plantes aquatiques, a été avancée ultérieurement. À Hawaï, en revanche, Englund & al. (2000) attribuent explicitement l’introduction de Crocothemis servilia à des plantes aquatiques ou d’aquarium. Crocothemis servilia fournit ainsi un exemple important du passage possible entre transport accidentel, reproduction locale, établissement puis expansion : ce qui demeure généralement en Europe une introduction confinée peut, dans un contexte climatique favorable comme en Floride, devenir une véritable colonisation.
En Floride comme à Hawaï, l’espèce est aujourd’hui durablement établie et reproductrice.
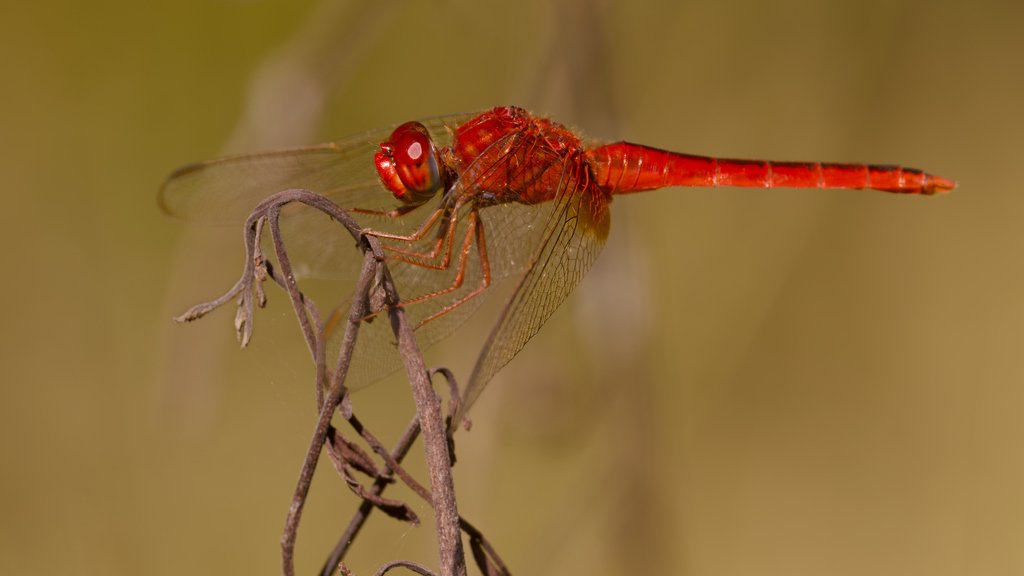
©© byncsa – G.T.Leavens – iNaturalist
Une donnée française qui se dérobe : Sympetrum infuscatum
Le cas français de Sympetrum infuscatum cité par Laister & al. (2014) illustre les difficultés d’interprétation de ce type de données. Les auteurs mentionnent une photographie attribuée à Nousty, dans les Pyrénées-Atlantiques, le 9 août 2006, et citent J.P. Boudot in litt.
Joss Deffarges a réexaminé ce dossier en 2014 : si l’examen du cliché confirme l’identification de Sympetrum infuscatum posé sur un bouton floral d’Hemerocallis, il a formellement invalidé la localisation française. Les vérifications géographiques in situ (notamment l’alignement de l’arrière-plan et de l’arbre visible sur la photo) excluent toute introduction accidentelle dans le jardin familial. Le cliché provient en réalité directement du Japon, pris par une connaissance en voyage et intégré par erreur de transfert de messagerie dans les dossiers numériques de Nousty. La donnée a depuis été supprimée de l’ensemble des bases de données institutionnelles. Elle ne peut donc plus être retenue comme une mention française fiable, mais constitue un cas d’école de la traçabilité des occurrences inhabituelles.
C’est dans ce contexte que doit être examinée l’évocation française d’Ischnura senegalensis. Le mécanisme invoqué serait tout à fait cohérent avec ce qui est observé ailleurs : l’espèce est documentée dans des aquariums, serres ou installations liées au commerce des plantes aquatiques en Allemagne, Autriche, Belgique, Finlande, Grande-Bretagne, Pologne et Suisse. Mais, dans le matériel considéré ici, aucun cas français précis ne vient étayer cette hypothèse. Le contraste avait déjà été souligné dans l’inventaire initial : malgré la plausibilité du mécanisme, aucun cas français comparable n’y était retrouvé. Une éventuelle donnée métropolitaine d’Ischnura senegalensis provenant d’un aquarium, d’une jardinerie, d’une serre ou d’un bassin doit donc être traitée comme possible mais non démontrée. Son intérêt réside précisément dans cette absence de documentation : retrouver une localité, une date, un observateur, un spécimen, une photographie ou une source primaire permettrait de transformer une mention aujourd’hui hypothétique en véritable donnée faunistique.
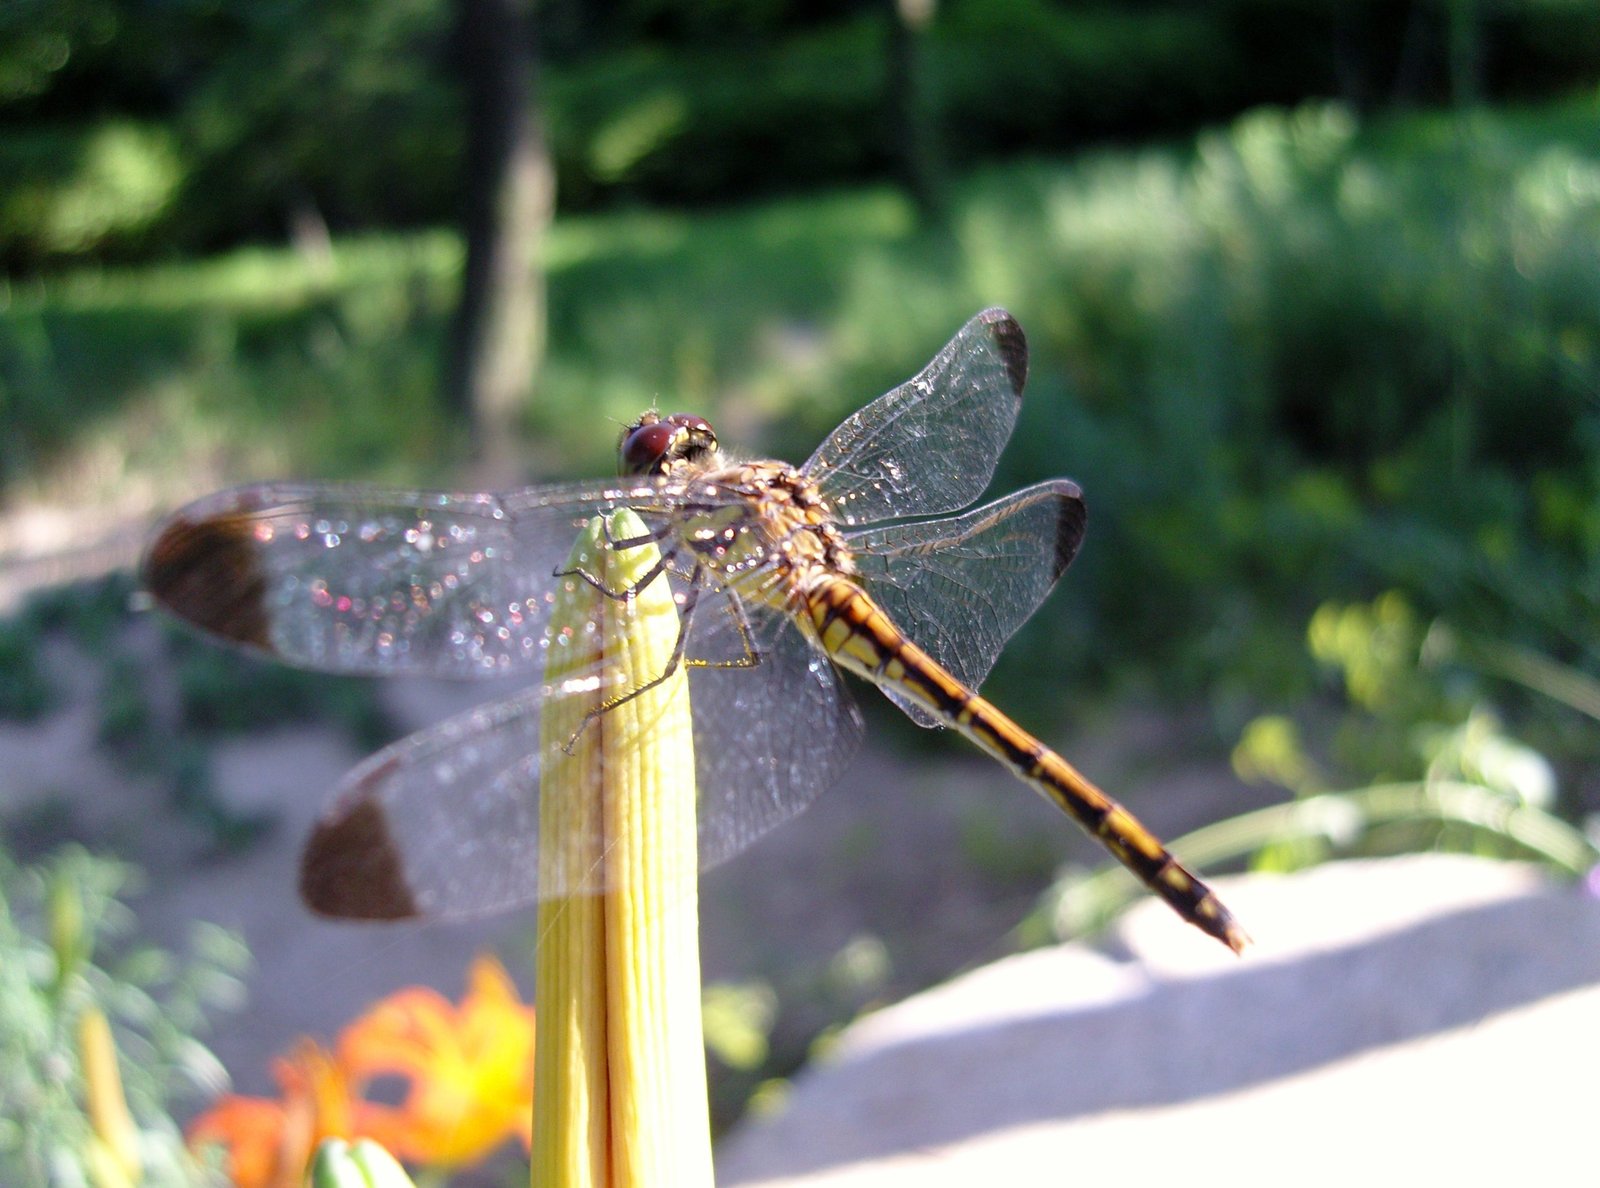
© collection Joss Deffarges
Planche de Thome – XIXe siècle
Des larves d’Odonates sont aussi assez régulièrement signalées par des aquariophiles français, notamment après l’introduction de plantes. Généralement indéterminées et non documentées scientifiquement, elles montrent qu’un potentiel de connaissances reste largement inexploité.
Taxons indéterminés, données douteuses et cas à distinguer
Tous les signalements ne doivent pas être intégrés au même niveau dans l’inventaire spécifique.
À Wels, Laister & al. (2014) mentionnent également Aciagrion sp. et Agriocnemis cf. nana Laidlaw, 1914. Leur détermination ne permet pas de les compter comme espèces identifiées avec certitude. Un ancien Mecistogaster sp. est par ailleurs connu de Pologne, tandis qu’un Pseudagrion sp. provenant de serres britanniques pourrait correspondre à Pseudagrion microcephalum sans que cette attribution soit certaine.
Le cas allemand d’Ischnura ramburii (Selys, 1850) doit être retiré de l’inventaire : le réexamen effectué par Seehausen (2019) n’a pas permis de distinguer avec certitude le spécimen d’I. senegalensis.
Pachydiplax longipennis (Burmeister, 1839), observée en 1999 sur une plate-forme pétrolière de mer du Nord, constitue également un cas ambigu, car il demeure impossible de déterminer s’il s’agit d’un transport anthropique ou d’un véritable déplacement naturel.
Enfin, Ischnura elegans (Vander Linden, 1820) et Aeshna cyanea (Müller, 1764) ont elles aussi été transportées accidentellement par la filière aquariophile en Allemagne. Leur présence n’entre cependant pas dans l’inventaire des Odonates exotiques introduits, puisqu’il s’agit d’espèces indigènes en Allemagne.
Capacité des Odonates à se trouver là où ils ne sont pas
À côté des introductions accidentelles directement liées au commerce des plantes aquatiques, certaines observations montrent plus largement la capacité des Odonates à apparaître dans des territoires où ils ne sont pas initialement présents. Il ne s’agit plus nécessairement ici d’espèces transportées avec des plantes de bassin, d’aquarium ou de jardinerie, mais d’individus ayant franchi, naturellement ou avec une assistance anthropique indirecte, des barrières géographiques parfois considérables. Les îles très isolées et les marges climatiques de leur aire de répartition constituent à cet égard des situations particulièrement instructives : elles permettent d’observer toutes les étapes allant de la présence exceptionnelle d’un individu erratique à la répétition d’arrivées, puis à la colonisation et, parfois, à l’établissement durable d’une population.
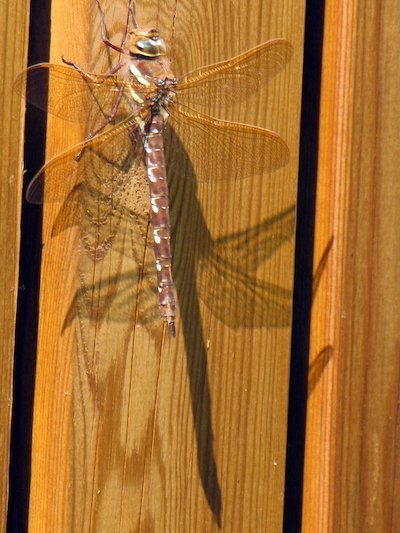
©© bync – F.Ingimarsson
L’Islande constitue l’un des exemples les plus extrêmes puisqu’aucun Odonate n’y est actuellement résident. Hemianax ephippiger (Burmeister, 1839) y a néanmoins été observé de manière répétée en 1941, en 1964 puis à plusieurs reprises en octobre ou novembre 1971 (Norling 1967, Mikkola 1968, Olafsson 1975, Tuxen 1976). L’observation de 1964 est particulièrement remarquable puisque Mikkola (1968), à partir de la situation météorologique, interprète l’arrivée comme le résultat d’un transport atmosphérique depuis la Méditerranée orientale, démontrant la capacité d’un grand Aeshnidae migrateur à franchir plusieurs centaines, voire plus d’un millier de kilomètres au-delà de ses populations habituelles sans pour autant fonder une population. Deux autres Aeschnides ont plus récemment atteint l’île : une Aeshna grandis (Linnaeus, 1758) fut photographiée à Reykjavík le 10 août 2011, observation pour laquelle un transport accidentel par bateau a été envisagé, tandis qu’un mâle de Aeshna affinis Vander Linden, 1820 fut observé en août 2018 à Jökuldalur, cas compatible avec le comportement migrateur connu de l’espèce (Fontaine 2011, Gunnarsson 2018). Deux autres Odonates, un Sympetrum et un Coenagrionidae, sont représentés dans les collections islandaises, mais les circonstances précises de leur arrivée demandent encore à être établies.
Le Groenland fournit un précédent historique très singulier. Dans sa Fauna Groenlandica, Fabricius (1780) mentionne sous le nom de Libellula virgo un Odonate qu’il dit avoir observé une seule fois près d’un petit cours d’eau durant son séjour dans le sud-ouest du Groenland, entre 1768 et 1773. Cette observation, longtemps mise en doute puisque le Groenland ne possède toujours aucune population résidente connue d’Odonates, a été réexaminée en détail par Schorr (2012). D’après les caractères décrits par Fabricius — ailes brunâtres tenues relevées au repos, pseudoptérostigma blanc bien visible et corps verdâtre — l’individu était très probablement une femelle de Calopteryx maculata (Palisot de Beauvois, 1807), espèce nord-américaine, plutôt que le Calopteryx virgo européen auquel Fabricius l’avait rapporté. Les populations nord-américaines susceptibles d’avoir constitué la source se situent à environ 1 800 km de la côte sud-ouest du Groenland, tandis que les populations européennes de Calopteryx virgo se trouvent à quelque 2 600 à 2 800 km. Schorr privilégie donc l’hypothèse d’un individu arraché à l’Amérique du Nord et entraîné accidentellement vers le Groenland par une forte circulation atmosphérique, probablement lors d’une tempête. Ce très ancien signalement illustre ainsi, comme les observations islandaises, la possibilité pour un Odonate d’atteindre exceptionnellement un territoire où les conditions ne permettent pas son établissement durable (Fabricius 1780, Schorr 2012).
Les Shetland représentent une situation différente : l’archipel, situé à environ 170 km au nord de l’Écosse continentale mais relié biogéographiquement à celle-ci par les Orcades et Fair Isle, possède une faune odonatologique historiquement extrêmement pauvre mais montre les étapes d’une colonisation progressive. Enallagma cyathigerum (de Charpentier, 1840), signalé dès 1896, constitue l’élément résident ancien de cette faune et reste le principal Odonate régulièrement reproducteur de l’archipel. D’autres espèces ont longtemps conservé le statut de simples visiteurs : Aeshna juncea (Linnaeus, 1758), signalée pour la première fois en 1955 mais connue seulement par de rares observations, Libellula quadrimaculata Linnaeus, 1758, notée à partir de 1958, et Hemianax ephippiger, dont la première mention remonte à 1970, témoignent de déplacements capables d’atteindre les Shetland sans conduire immédiatement à l’établissement. Le changement le plus significatif concerne Pyrrhosoma nymphula (Sulzer, 1776), découvert près de Voe en 2004 et désormais considéré comme localement résident : ce Zygoptère illustre le passage d’une barrière géographique et climatique longtemps suffisante pour empêcher son implantation à une colonisation effective de l’archipel (Pennington 2005). Coenagrion puella (Linnaeus, 1758), observé à partir de 2010, semble pour l’instant relever plutôt de l’arrivée occasionnelle que de l’établissement, tandis qu’un grand Aeshnidae attribué à Anax imperator Leach in Brewster, 1815 fut signalé à Papa Stour en 2019 sans que l’identification puisse être considérée comme totalement assurée. Les Shetland présentent ainsi, sur une distance d’isolement relativement faible en comparaison des îles ultra-océaniques, toutes les étapes allant du vagabond à la colonisation permanente et montrent combien une faune insulaire considérée comme stable peut s’enrichir progressivement.
À une autre échelle, l’atoll de Ngulu, en Micronésie, situé à environ 105 km de Yap et 350 km de Palau, illustre le cas d’arrivées régulières sans population permanente démontrée : Pantala flavescens (Fabricius, 1798) y fut observée en août 2008 après plusieurs semaines de prospection sans aucun Odonate ; aucune exuvie n’y fut trouvée et les habitants indiquaient que ces libellules apparaissaient surtout en août et septembre, notamment avec des vents d’ouest, ce qui suggère des immigrations saisonnières répétées plutôt qu’une reproduction locale permanente (Buden 2010).
L’île Amsterdam fournit un cas encore plus spectaculaire de franchissement océanique. Située au milieu du sud de l’océan Indien, à plus de 3 000 km des grandes masses continentales les plus proches, elle reçut en février 2017 au moins deux adultes vivants de Pantala flavescens, premier Odonate documenté sur cette île et, selon Devaud & Lebouvier (2019), première observation d’un Odonate dans les îles subantarctiques. Les conditions météorologiques rendent crédible une arrivée naturelle à très longue distance mais, malgré la présence de quelques milieux aquatiques susceptibles de permettre la ponte, les températures sont de toute évidence trop basses pour permettre l’achèvement du développement larvaire ; l’arrivée est donc démontrée, mais aucune colonisation durable ne l’est.
L’île de Pâques (Rapa Nui), située à environ 3 500 km des côtes sud-américaines, fournit au contraire l’exemple d’une colonisation océanique parvenue jusqu’à son terme. Pantala flavescens y est le seul Odonate connu, mais elle ne s’y présente pas comme un simple vagabond : des larves ont été découvertes dans plusieurs milieux aquatiques, notamment les lacs de cratère, et la reproduction locale a été directement démontrée (Dumont & Verschuren 1991). Cette population extrêmement isolée présente en outre des particularités écologiques, morphologiques et comportementales qui la distinguent des populations migratrices continentales (Samways & Osborn 1998). Des travaux génétiques ultérieurs ont également montré une différenciation nette de la population de Rapa Nui par rapport aux autres populations étudiées, ce qui renforce l’hypothèse d’un effet fondateur ancien suivi d’un isolement prolongé. L’ensemble suggère qu’après un événement de dispersion à très longue distance, P. flavescens a pu former sur l’île une population durable, secondairement différenciée et moins nettement migratrice que les populations continentales.
Clipperton, atoll français du Pacifique oriental situé à plus de 1 000 km des côtes mexicaines, illustre un autre devenir possible d’une population insulaire : l’installation suivie d’une disparition (Deliry [2026]). Deux Odonates y furent signalés à la fin des années 1960 (Aguesse & Gaillot 1968), Ischnura ramburii (de Selys Longchamps, 1850) et Anax amazili (Burmeister, 1839). Pour Ischnura ramburii, la découverte de larves dans les contenus stomacaux de poissons du lagon démontre qu’une population reproductrice existait effectivement sur l’atoll. Un spécimen rapporté de Clipperton en 1980 et conservé au Muséum d’histoire naturelle de Marseille montre que l’espèce y était encore présente treize ans plus tard (Dommanget 2002). En revanche, ni Ischnura ramburii ni Anax amazili ne furent retrouvés lors des prospections approfondies menées en 2004-2005, malgré des recherches portant également sur les milieux aquatiques susceptibles d’héberger leurs larves (Garrouste & Hervé 2009). L’extinction locale d’Ischnura ramburii apparaît ainsi probable, tandis que l’existence même d’une ancienne population reproductrice d’A. amazili demeure incertaine. Clipperton complète donc le continuum observé sur les îles isolées : une espèce peut non seulement atteindre un territoire éloigné et s’y reproduire, mais aussi disparaître secondairement si les conditions ayant permis son établissement cessent d’être réunies.
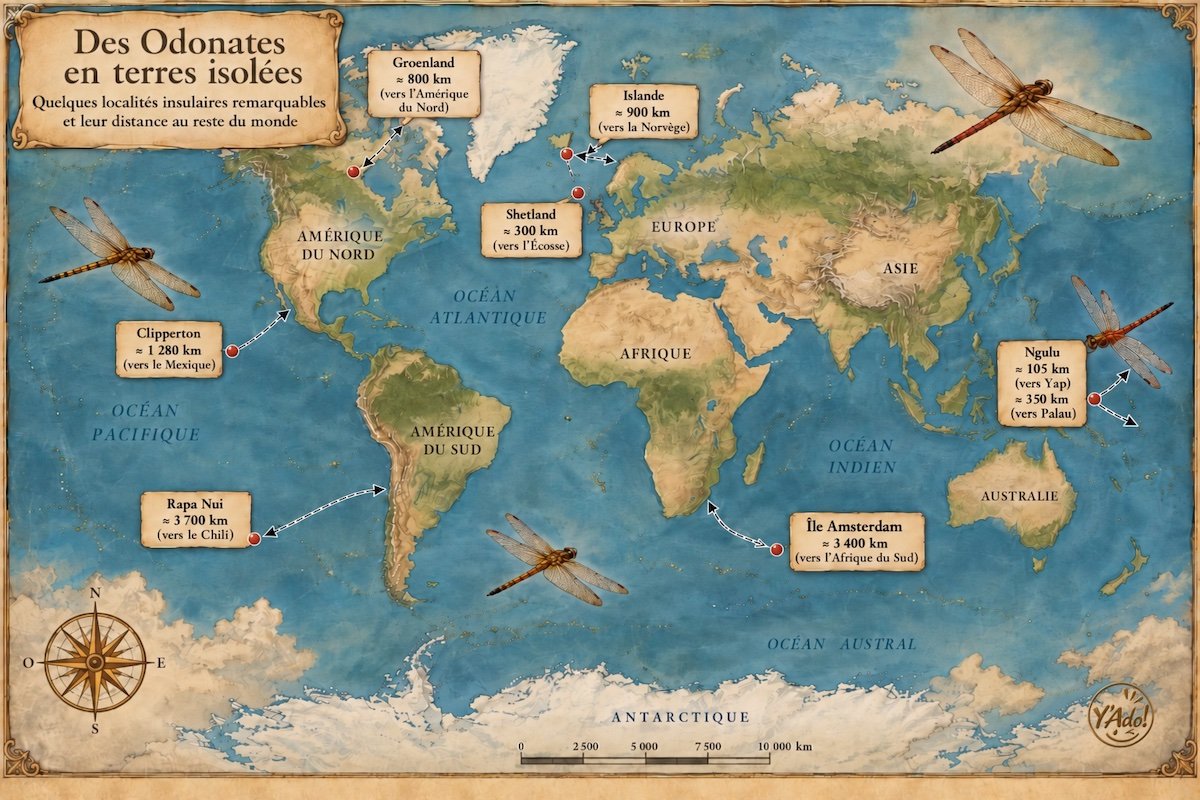
Y’Ado! selon mes consignes – ©© byncsa – Cyrille Deliry
Ces différentes localités dessinent ainsi un véritable continuum biogéographique : l’Islande représente surtout la réception exceptionnelle de migrants ou d’individus transportés, les Shetland une faune insulaire pauvre mais progressivement enrichie par de nouvelles colonisations, Ngulu des arrivées saisonnières sans reproduction démontrée, Amsterdam une dispersion transocéanique réussie mais apparemment sans établissement, et Rapa Nui l’aboutissement du processus avec reproduction, permanence et différenciation d’une population insulaire. Elles montrent surtout que la distance d’isolement ne suffit pas à expliquer l’établissement : les capacités migratoires des espèces, la fréquence des arrivées, l’existence d’habitats larvaires convenables et, surtout, les conditions climatiques déterminent si l’Odonate restera un visiteur exceptionnel ou deviendra un élément permanent de la faune locale.
Conclusion
Le cas français hypothétique qui a servi de point de départ à cette enquête débouche ainsi sur une problématique beaucoup plus large que celle des seules introductions liées au commerce des plantes aquatiques. Les données européennes montrent d’abord combien les échanges horticoles et aquariophiles peuvent déplacer discrètement œufs et larves sur de très longues distances : plusieurs dizaines d’espèces tropicales ont ainsi atteint l’Europe, parfois à de nombreuses reprises et dans plusieurs pays. La plupart de ces introductions restent confinées aux aquariums, serres ou installations commerciales, mais le devenir de Crocothemis servilia en Floride, à Hawaï ou à Cuba rappelle qu’un transport accidentel peut, lorsque les conditions écologiques et climatiques le permettent, déboucher sur une reproduction locale, puis sur l’établissement et l’expansion d’une population.
Les Odonates n’ont cependant pas besoin de l’Homme pour se trouver très loin de leurs territoires habituels. Les cas du Groenland et de l’Islande montrent que des individus peuvent être entraînés sur plusieurs centaines ou milliers de kilomètres par les circulations atmosphériques. Ngulu semble recevoir régulièrement des Pantala flavescens migratrices sans qu’une population permanente s’y installe, tandis que l’île Amsterdam a été atteinte par la même espèce sans qu’une colonisation durable y soit connue, les conditions thermiques paraissant peu favorables à l’achèvement du développement larvaire. Les Shetland illustrent une étape supplémentaire, celle d’un archipel longtemps pauvre en espèces progressivement rejoint puis colonisé par de nouveaux Odonates. Rapa Nui montre qu’un franchissement océanique exceptionnel peut aboutir à une population reproductrice durable et secondairement différenciée, et Clipperton rappelle qu’une colonisation réussie peut elle-même n’être que temporaire.
Transport involontaire, assistance anthropique, dérive atmosphérique, migration active et colonisation ne constituent donc pas des phénomènes indépendants, mais différentes voies par lesquelles un Odonate peut apparaître là où on ne l’attend pas. La simple présence d’un individu ne suffit jamais à définir son statut : il faut distinguer le spécimen transporté, le vagabond, l’immigrant répété, le reproducteur occasionnel et l’espèce véritablement établie.
Dans ce contexte, l’absence de données françaises fiables contraste singulièrement avec l’abondance des observations publiées dans plusieurs autres pays européens, particulièrement en Allemagne et en Autriche. Cette différence paraît surtout traduire un intérêt inégal porté à la question. Il y a pourtant peu de raisons de penser que les mêmes circuits commerciaux de plantes aquatiques qui acheminent régulièrement des œufs et des larves jusqu’en Allemagne, en Autriche, en Belgique ou ailleurs en Europe épargneraient particulièrement notre pays. Il serait donc utile que les naturalistes français prêtent davantage attention à ces occurrences marginales, souvent considérées comme de simples curiosités, en les documentant. Ces observations sont loin d’être anecdotiques à l’échelle européenne : elles renseignent directement les mécanismes contemporains de déplacement des Odonates et les premières étapes susceptibles, dans certaines circonstances, de conduire à leur établissement.
À La Réunion, la reproduction locale d’Hemianax ephippiger ou la présence régulière de Pantala flavescens montrent que, même au sein d’une faune odonatologique déjà constituée, la frontière entre visiteur, colonisateur et résident reste mouvante. Ceci souligne tout l’intérêt de rassembler les informations sur les capacités de dispersion, de reproduction et d’installation des Odonates en terres inattendues.
Cyrille Deliry – Niort le 30 septembre 2026
Bibliographie
- Adriaens T. & De Knijf G. 2015 – A first report of introduced non-native damselfly species (Zygoptera, Coenagrionidae) for Belgium. – Belgian Journal of Zoology, 145 (1) : 76-80.
- Agassiz D. 1981 – Further introduced china mark moths (Lepidoptera: Pyralidae) new to Britain. – Entomologist’s Gazette, 32 : 21-26.
- Aguesse P. & Gaillot P. 1968 – Note sur deux espèces d’Odonates de l’atoll de Clipperton. – Bulletin du Muséum national d’histoire naturelle, 2e série, 40 (6) : 1162-1163.
- Benken T. & Kommander M. 2011 – Die Senegal-Pechlibelle (Ischnura senegalensis) schlüpft in einem Aquarium bei Ulm. – Mercuriale, 11 : 51-52.
- Bernard R. 2005 – First record of Aeshna affinis Vander Linden, 1820 in Lithuania (Anisoptera: Aeshnidae) and corrective notes on the Lithuanian Odonata checklist. – Notulae Odonatologicae, 6 (6) : 53-55.
- Billqvist M. 2014 – Om exotiska trollsländor i Sverige. – Fauna & Flora, 109 (1) : 10-13.
- Brooks S.J. 1988 – Exotic dragonflies in north London. – Journal of the British Dragonfly Society, 4 (1) : 9-12.
- Buczyński P. & Bielak-Bielecki P. 2012 – Crocothemis servilia (Drury, 1773) (Odonata: Libellulidae) introduced with aquarium plants to Lublin (Poland). – Annales Universitatis Mariae Curie-Skłodowska, Sectio C, Biologia, 67 (2) : 21-26.
- Buczyński P. & Obłoza P. 2018 – Pierwsze stwierdzenie zawleczenia egzotycznej ważki Ischnura senegalensis (Rambur, 1842) (Odonata: Coenagrionidae) do Polski. – Odonatrix, 14 (1) : 1-8.
- Buczyński P., Bobrek M. & Bobrek R. 2020 – Interesujące stwierdzenie zawleczenia egzotycznej ważki Pseudagrion microcephalum (Rambur, 1842) (Odonata: Coenagrionidae) do Polski. – Odonatrix, 16 (5) : 1-6.
- Buden D.W. 2010 – Pantala flavescens (Insecta: Odonata) rides west winds into Ngulu Atoll, Micronesia: evidence of seasonality and wind-assisted dispersal. – Pacific Science, 64 (1) : 141-143.
- Couteyen S. & Papazian M. 2007 – Contribution à la connaissance des Odonates de l’île de la Réunion. 8. Hemianax ephippiger (Burmeister, 1839), une espèce nouvelle pour l’île (Odonata Aeshnidae). – L’Entomologiste, 63 (4) : 181-183.
- Daigle J.J. & Rutter R.P. 1984 – New county records for Crocothemis servilia (Dru.) from Florida, United States (Anisoptera: Libellulidae). – Notulae Odonatologicae, 2 (4) : 63.
- [Deliry C. 2026] – Mystère à Clipperton : un bout de France qui n’a plus de libellules. – Blog des Histoires Naturelles, 24 août 2026.
- Devaud M. & Lebouvier M. 2019 – First record of Pantala flavescens (Anisoptera: Libellulidae) from the remote Amsterdam Island, southern Indian Ocean. – Polar Biology, 42 : 1041-1046.
- Díaz Martínez C. & Conesa García M.A. 2021 – Primer registro de una introducción accidental de un odonato exótico en la península ibérica: Pseudagrion microcephalum (Rambur, 1842) (Odonata, Coenagrionidae). – Boletín de la Asociación Española de Entomología, 45 (3-4) : 307-309.
- Dommanget J.L. 2002 – Données sur les collections d’odonates du Muséum d’histoire naturelle de Marseille. – Martinia, 18 (3), septembre 2002.
- Dumont H.J. & Verschuren D. 1991 – Atypical ecology of Pantala flavescens (Fabr.) on Easter Island (Anisoptera: Libellulidae). – Odonatologica, 20 (1) : 45-51.
- Englund R.A., Arakaki K., Preston D.J., Coles S.L. & Eldredge L.G. 2000 – Nonindigenous freshwater and estuarine species introductions and their potential to affect sportfishing in the lower stream and estuarine regions of the south and west shores of Oahu, Hawaii. – Bishop Museum Technical Report, 17 : viii + 121 pp.
- Fabricius O. 1780 – Fauna Groenlandica, systematice sistens animalia Groenlandiae occidentalis hactenus indagata. – Ioannis Gottlob Rothe, Hafniae : XVI + 452 pp.
- Fontaine A.S. 2011 – Dragonfly Spotted In Iceland. – The Reykjavík Grapevine.
- Ford W.K. 1954 – Lancashire and Cheshire Odonata (some further notes). – The North Western Naturalist, 25 : 602-603.
- Garrouste R. & Hervé C. 2009 – La faune des insectes (Insecta s. l.) de l’Atoll de Clipperton.– in : Charpy L. (coord.)– Clipperton, environnement et biodiversité d’un microcosme océanique. – Paris, MNHN, Marseille, IRD, Collection Patrimoines naturels, n° 68 : 309 & seq.
- Gunnarsson G. 2018 – Sjaldséð fluga fannst á Jökuldal. – Austurfrétt.
- Kipping J. 2006 – Globalisierung und Libellen: Verschleppung von exotischen Libellenarten nach Deutschland (Odonata: Coenagrionidae, Libellulidae). – Libellula, 25 (1-2) : 109-116.
- Laister G., Lehmann G. & Martens A. 2014 – Exotic Odonata in Europe. – Odonatologica, 43 (1-2) : 125-135.
- Lambertz M. & Schmied H. 2011 – Records of the exotic damselfly Ischnura senegalensis (Rambur, 1842) from Bonn (Germany). – Bonn zoological Bulletin, 60 (2) : 211-213.
- Lieftinck M.A. 1978 – Over een onopzettelijke kweek van een tropisch-Aziatische libel uit een verwarmd aquarium in Nederland (Odonata, Gomphidae). – Entomologische Berichten, 38 : 145-150.
- Martens A. & Griese J. 2009 – Verschleppung von Agriocnemis pygmaea mit exotischen Wasserpflanzen nach Deutschland (Odonata: Coenagrionidae). – Libellula, 28 (3-4) : 187-189.
- Martens A. & Schiel F.-J. 2009 – Pseudagrion microcephalum mit exotischen Wasserpflanzen nach Deutschland verschleppt (Odonata: Coenagrionidae). – Mercuriale, 9 : 27-29.
- Mikkola L. 1968 – Hemianax ephippiger (Burm.) (Odonata) carried to Iceland from the Eastern Mediterranean by an air current. – Opuscula Entomologica, 33 (1-2) : 111-113.
- Norling U. 1967 – Hemianax ephippiger (Burm.) found in Iceland (Odonata). – Opuscula Entomologica, 32 (1/2) : 99-100.
- Olafsson E. 1975 – Drekafluhan Hemianax ephippiger (Burm.) (Odonata), óvæntur gestur á Islandi. – Nátúrufrædinguriin (Reykjavik), 42 (2) : 209-212.
- Parr A.J. 2000 – Blue Dasher Pachydiplax longipennis (Burmeister) on an oil rig in the North Sea. – Atropos, 10 : 3-5.
- Parr A.J. 2010 – Records of exotic Odonata in Britain during 2010. – Atropos, 41 : 39-42.
- Paulson D.R. 1978 – An Asiatic dragonfly, Crocothemis servilia (Drury), established in Florida (Anisoptera: Libellulidae). – Notulae Odonatologicae, 1 (1) : 9-10.
- Paulson D.R. 1978 – Additional record of Crocothemis servilia (Drury) from Florida (Anisoptera: Libellulidae). – Notulae Odonatologicae, 1 (2) : 29-30.
- Pennington M. 1995 – The common blue damselfly Enallagma cyathigerum and other Odonata records in Shetland. – The Entomologist’s Record and Journal of Variation, 107 : 165-170.
- Pennington M. 2005 – First record of large red damselfly Pyrrhosoma nymphula (Odon.: Coenagrionidae) in Shetland. – The Entomologist’s Record and Journal of Variation, 117 (2) : 84.
- La référence de la checklist est :
- Pennington M. & Harvey P. 2023 – Provisional Checklist of the Ephemeroptera, Odonata, Plecoptera & Trichoptera of Shetland. – Shetland Fauna & Flora, version 0.9.
- Polhemus D.A. 1995 – New Heteroptera and Odonata (Insecta) records and range extensions in the Hawaiian Islands. – Bishop Museum Occasional Papers, 42 : 42-43.
- Samways M.J. & Osborn R. 1998 – Divergence in a transoceanic circumtropical dragonfly on a remote island. – Journal of Biogeography, 25 (5) : 935-946.
- Schiel F.-J. & Martens A. 2021 – Dritter Aquariennachweis von Orthetrum sabina (Drury) in Deutschland. – Mercuriale, 21 : 57-59.
- Schorr M. 2012 – Libellula virgo Linnaeus, 1758 auf Grönland – Eine Neubewertung der Beobachtung von Fabricius (1780). – International Dragonfly Fund Report, 52 : 1-44.
- Seehausen M. & von Blanckenhagen B. 2012 – Pseudagrion microcephalum (Rambur, 1842) und Crocothemis servilia (Drury, 1773) – zwei exotische Libellenarten in Hessen. – Libellen in Hessen, 5 : 58-62.
- Seehausen M. 2014 – Orthetrum sabina über den Aquaristikhandel nach Deutschland importiert (Odonata: Libellulidae). – Libellula, 33 : 109-112.
- Seehausen M. 2018 – Orthetrum chrysostigma, the first predominantly African dragonfly species introduced to a European country via aquarium trade (Odonata: Libellulidae). – Notulae Odonatologicae, 9 (1) : 6-10.
- Seehausen M. 2018 – Anax guttatus erstmals über den Aquaristikhandel nach Deutschland importiert (Odonata: Aeshnidae). – Libellula, 37 (1-2) : 91-96.
- Seehausen M. 2019 – Über den Aquaristikhandel nach Deutschland importierte Libellen (Odonata) – eine Übersicht der letzten Jahre. – Libellen in Hessen, 12 : 71-79.
- Stanionyte A.P. 1989 – Sympetrum eroticum Selys new to the Lithuanian SSR Odonata species, found in 1988. – In : Jonaitis V. (ed.), New and rare insect species of the Lithuanian SSR; records and descriptions of 1989 : 9-11.
- Troast D. & al. 2016 – A global population genetic study of Pantala flavescens. – PLoS ONE, 11 (3).
- Tuxen S.L. 1976 – Odonata. – Zoology of Iceland, 3 (39a) : 1-7.
- Valtonen P. 1985 – Exotic dragonflies imported accidentally with aquarium plants to Finland. – Notulae Odonatologicae, 2 (5) : 87-88.
- Waning Vos H. 2005 – Het verhaal over Crocothemis servilia. – NVL Nieuwsbrief, 9 (4) : 8.
- Wasscher M. & Goutbeek E. 1998 – Tropische Neurothemis fluctuans (Fabricius) in Nederlandse plantenkas. – Brachytron, 2 (1) : 16-17.
- Wasscher M.T. & Bos F.G. 2000 – The European dragonflies: notes on the checklist and on species diversity. – Odonatologica, 29 (1) : 31-43.
- Wasscher M. & Ruiter E. 2005 – Crocothemis servilia, een nieuwe exotische libellensoort voor Nederland. – NVL Nieuwsbrief, 9 (4) : 9.
Remerciements particuliers à Joss Deffarges qui a permis de révéler la réalité de l’observation supposée de Sympetrum infuscatum en France.
